

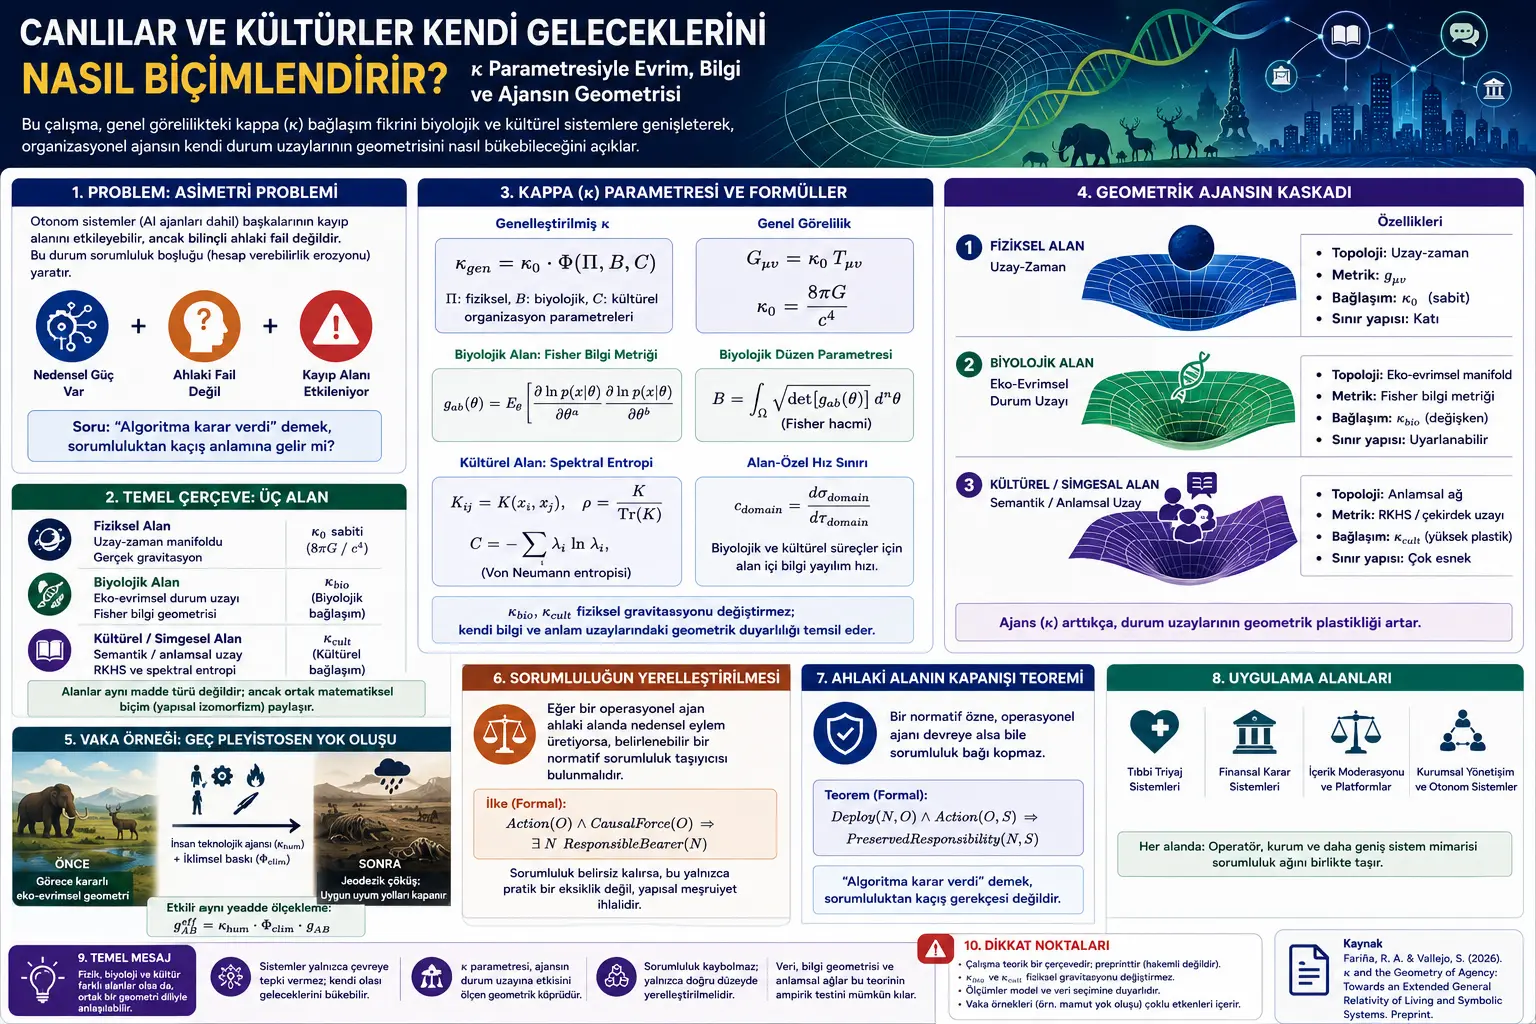
Изилдөөнүн негизги суроосу мындай: Физикалык аалам, тирүү системалар жана маданий/символдук түзүмдөр толугу менен өз-өзүнчө мыйзамдар менен түшүндүрүлүшү керекпи, же алардын ортосунда жалпы математикалык форма болушу мүмкүнбү?
Авторлор бул суроого “κ” деп аталган жалпыланган байланыш параметри аркылуу жооп издешет. Жалпы салыштырмалуулукта Эйнштейндин байланыш туруктуусу материя-энергия менен мейкиндик-убакыттын ийрилигинин ортосундагы мамилени түзөт. Бул изилдөөдө ошол эле формалдык идея кеңири алкакка көчүрүлөт: Физикада масса-энергия мейкиндик-убакытты кандай ийсе, биологиялык жана маданий системаларда да уюштуруучулук агенттүүлүк өзүнүн абал мейкиндигин, ыктымалдуулук талаасын же маани мейкиндигин калыптандыра алат.
Бул жерде “агенттүүлүк” деген сөз системанын өзүнүн мүмкүн болгон келечектерин, өз ара аракеттенүү тармагын же эволюциялык/маданий багытын өзгөртүү жөндөмү маанисинде колдонулат. Мисалы, тирүү түр айлана-чөйрөгө жөн гана пассивдүү ыңгайлашпайт; экологиялык ниша курат, башка түрлөрдүн өз ара аракеттенүү талаасын өзгөртөт жана өзүнүн эволюциялык жолдоруна таасир этет. Ушундай эле түрдө маданий системалар да символдор, технологиялар, тилдер жана маани тармактары аркылуу өздөрүнүн мүмкүн болгон келечектерин кайра калыптандырат.
Изилдөөнүн көңүл бурарлык жагы — муну физикалык тартылуу күчү катары чечмелебегенинде. Авторлор биологиялык жана маданий көп түрдүүлүктөр физикалык мейкиндик-убакыт өлчөмдөрү эмес, абстракттуу статистикалык жана маанилик абал мейкиндиктери экенин ачык белгилешет. Ошондуктан κbio же κcult, физикалык гравитацияны өзгөртпөйт; алар биологиялык жана маданий системалардын өз маалымат мейкиндиктериндеги геометриялык сезгичтигин билдирет.
Көйгөй эмнеде?
Табигый илимдерде көптөн бери маанилүү бир көйгөй бар: Физикалык кубулуштар адатта так себептик мыйзамдар, энергия, талаалар жана геометрия менен түшүндүрүлөт. Ал эми биологиялык жана маданий кубулуштар көбүнчө статистикалык, тарыхый, функционалдык, телеономиялык же чечмелөөчү тилдер менен түшүндүрүлөт. Мунун айынан физика менен биология/маданияттын ортосунда ажырым бардай көрүнүш пайда болот.
Бир жагынан баарын негизги физикалык бөлүкчөлөргө чейин кыскартууга аракет кылган редукционисттик мамиле бар. Бул мамиле тирүүлүктү, эволюцияны же маданиятты жөн гана физикалык бөлүктөрдүн натыйжасы катары көрүүгө жакын. Экинчи жагынан ар бир тармактын өзүнчө мыйзамдары бар деп эсептеген бөлүкчөлүү плюрализм бар. Мындайда физика, биология жана маданияттын ортосунда жалпы тил түзүү кыйындайт.
Изилдөө ушул эки чектен качууну максат кылат. Авторлор физикалык материя деңгээлинде биримдик сунуштоонун ордуна, математикалык форма деңгээлинде биримдик сунушташат. Ошого ылайык жалпы салыштырмалуулуктун талаа теңдемелери физикалык гравитациянын гана теңдемелери катары эмес, татаал системаларда “уюштуруучулук түзүм өзүнүн абал мейкиндигин кантип ийет?” деген суроонун формалдык модели катары да окулушу мүмкүн.
Ошондуктан изилдөөнүн көйгөйү жөн гана физикалык көйгөй эмес. Негизги маселе — тирүү жана символдук системалар өздөрүнүн ыктымалдуулук талааларын кантип өзгөртөрүн математикалык түрдө көрсөтүү.
Ыкма эмнени сунуштайт?
Изилдөө эксперименттик маалымат талдоосунан башталбайт; теориялык алкак курат. Бул алкактын борборунда “жалпыланган κ” турат. Жалпы салыштырмалуулукта κ туруктуусу энергия-импульс менен геометриянын ортосундагы байланышты билдирет. Бул изилдөөдө κ кеңири мааниде системанын уюштуруучулук агенттүүлүгү өзүнүн абал мейкиндигинин геометриясына канчалык таасир бере аларын көрсөткөн параметрге айландырылат.
Авторлор үч тармакты бири-биринен бөлүшөт: физикалык тармак, биологиялык тармак жана маданий/символдук тармак. Физикалык тармак чыныгы мейкиндик-убакыт көп түрдүүлүгүнө тиешелүү. Биологиялык тармак эко-эволюциялык абалдардын статистикалык көп түрдүүлүгү катары каралат. Маданий тармак болсо символдор, түшүнүктөр жана маани мамилелеринен түзүлгөн абстракттуу семантикалык мейкиндик катары моделденет.
Бул үч тармак бирдей физикалык объект түрү эмес. Бирок алардын ар бири өз ичинде “геометрияга” ээ болушу мүмкүн. Физикада бул геометрия мейкиндик-убакыттын ийрилиги. Биологияда бул геометрия түрлөр, экологиялык өз ара аракеттер, метаболизм агымдары жана эволюциялык ыктымалдыктар түзгөн абал мейкиндиги. Маданиятта болсо маанилер, технологиялар, түшүнүктөр жана символдук мамилелер түзгөн семантикалык мейкиндик.
Изилдөө биологиялык тармак үчүн маалымат геометриясын колдонот. Маалымат геометриясы — ыктымалдуулук бөлүштүрүүлөрүн геометриялык мейкиндиктер сыяктуу изилдеген математикалык тармак. Маданий тармак үчүн болсо Reproducing Kernel Hilbert Space, башкача айтканда кайра өндүрүүчү өзөктүү Гильберт мейкиндиги ыкмасы сунушталат. Бул түзүм символдук объекттердин ортосундагы окшоштук мамилелерин жогорку өлчөмдүү математикалык мейкиндикте көрсөтүүгө мүмкүндүк берет.
Формулалар эмнени түшүндүрөт?
Изилдөөдө формулалар борбордук мааниге ээ. Айрым формулалар PDF текстин чыгарууда саптарга бөлүнүп бузулгандай көрүнөт; төмөнкү LaTeX көрсөтүүлөрү тексттеги символдордун ырааттуулугуна жана математикалык маанисине мүмкүн болушунча так ылайыкташтырылып берилди. Так окулбаган тамыр жана даража белгилери өзүнчө белгиленген.
Изилдөөнүн негизги формуласы жалпыланган κ параметри:
Бул жерде κ0 жалпы салыштырмалуулуктагы Эйнштейн байланыш туруктуусун, Φ болсо системанын агенттүүлүк талаасын билдирет. Π физикалык, B биологиялык, C маданий/символдук уюшуу параметрлерин көрсөтөт. Негизги идея мындай: κ туруктуу жана универсалдуу физикалык байланыш бойдон калат, ал эми абстракттуу абал мейкиндиктери үчүн эффективдүү байланыш системанын уюшуу деңгээлине жараша өзгөрүшү мүмкүн.
Жалпы салыштырмалуулуктагы физикалык негиз төмөнкүдөй берилет:
Бул жерде Gμν мейкиндик-убакыт геометриясын, Tμν энергия-импульс тензорун, G Ньютондун тартылуу туруктуусун, c жарыктын ылдамдыгын көрсөтөт. Авторлор өзгөчө баса белгилеген нерсе: G физикалык туруктуу бойдон калат; кеңейтилген нерсе G эмес, геометрия менен системанын уюшулушунун ортосундагы байланышты билдирген κ формасы.
Биологиялык параметр B, Фишер маалымат геометриясы менен аныкталат. Фишер маалымат метрикасы ыктымалдуулук бөлүштүрүүлөрүнүн үй-бүлөсү параметрлердин өзгөрүшүнө канчалык сезгич экенин өлчөйт:
Бул формула биологиялык системанын абал мейкиндигинде параметрлердин чакан өзгөрүүлөрүн канчалык айырмалоого болорун көрсөтөт. Мисалы, түрлөрдүн көптүгү, метаболизм агымдары же ген экспрессиясынын бөлүштүрүлүшү ушундай маалымат геометриясынын ичинде көрсөтүлүшү мүмкүн.
Текстте биологиялык абал мейкиндигинин аралык элементи төмөнкү идея менен берилет:
Бул туюнтма биологиялык көп түрдүүлүктө эки абалдын ортосундагы геометриялык аралык Фишер маалымат метрикасы менен өлчөнөрүн билдирет.
Биологиялык тартип параметри B, Фишер көлөмү катары аныкталат:
PDF текстин чыгарууда бул формуладагы квадраттык тамыр белгиси так окулбайт; бирок Риман геометриясындагы стандарттуу көлөм элементинин негизинде туюнтма \(\sqrt{\det[g_{ab}]}\) түрүндө берилген. Формуланын мааниси мындай: Биологиялык система канчалык көп айырмаланчу уюштуруучулук абалга ээ болсо, B ошончолук чоңоёт.
Маданий параметр C, символдук түшүнүктөрдү өзөктүү мейкиндикте көрсөтүү аркылуу аныкталат. Түшүнүктөрдүн ортосундагы окшоштук Грам матрицасы менен көрсөтүлөт:
Бул матрица түшүнүктөрдүн бири-бирине канчалык жакын же алыс экенин көрсөтөт. Андан кийин нормалдаштырылган тыгыздык оператору аныкталат:
Маданий параметр ушул тыгыздык операторунун Von Neumann, башкача айтканда спектралдык энтропиясы менен берилет:
Бул жерде λi, нормалдаштырылган матрицанын өздүк маанилери. Маданий маани мейкиндиги көп өлчөмдүү, бай жана кең жайылган болсо энтропия жогорулайт. Эгер түшүнүктөр бир эле үстөмдүк кылган өлчөмгө куласа, энтропия төмөндөйт.
Изилдөөдө эки түшүнүктөн турган жөнөкөй оюнчук модель да берилет. Эки символдук объекттин ортосундагы окшоштук экспоненциалдык өзөк менен көрсөтүлөт:
Бул жерде α семантикалык байланыштын катуулугун, d(x_i,x_j) болсо эки түшүнүктүн ортосундагы аралыкты көрсөтөт. Нормалдаштырылган түзүмдөн алынган өздүк маанилер текстте төмөнкүдөй берилет:
PDF текстин чыгарууда эки өздүк маанинин экөө тең жаңылыш түрдө λ1 болуп көрүнөт; контекстке ылайык экинчи маани λ2 болуп иреттелген. Бул моделде α \to \infty болгондо түшүнүктөр ортогоналдуу болуп, энтропия болжол менен ln 2 ≈ 0.693 болот. α \to 0 болгондо болсо бүт семантикалык түзүм бир өлчөмгө кулап, энтропия нөлгө жакындайт.
Изилдөө биологиялык жана маданий тармактардагы себептүүлүктү көрсөтүү үчүн тармакка мүнөздүү ылдамдык чектерин да сунуштайт:
Бул туюнтма тиешелүү абал мейкиндигинде маалыматтын же өзгөрүүнүн таралуу ылдамдыгын билдирет. Биологияда бул эволюциялык адаптациянын эң жогорку ылдамдыгы; маданиятта болсо семантикалык айырмалануунун эң жогорку ылдамдыгы катары чечмеленет.
Бул жерде gAB биологиялык метрика, hij маданий/семантикалык метрика, τ болсо тармактын өзүнүн ички убакыт шкаласы.
Маалымат иштетүүнүн чеги болсо Бекенштейн тибиндеги жогорку чек менен байланышкан:
Бул туюнтма биологиялык жана маданий процесстер физикалык дүйнөдөн толугу менен ажыратылбаганын; маалымат иштетүү жана термодинамикалык чектер менен акырында байланыштуу экенин билдирет.
Кеч Плейстоцендеги жок болуу мисалында адам агенттүүлүгүнүн таасири эффективдүү метриканы кайра масштабдоо катары көрсөтүлөт:
Бул жерде κhum адамдын технологиялык агенттүүлүгүн, Φclim климаттык мажбурлоону, gAB болсо экологиялык абал мейкиндигинин негизги метрикасын билдирет. Изилдөөнүн чечмелөөсү мындай: Адамдын технологиялык агенттүүлүгү климаттык басым менен бирге экологиялык абал мейкиндигин ушундай кайра масштабдайт, натыйжада айрым түрлөр үчүн мурда ачык болгон ыңгайлашуу багыттары жабылышы мүмкүн.
График, таблица жана схеманын негизги билдирүүсү
Изилдөөнүн негизги схемасы “Геометриялык агенттүүлүктүн каскады” деп аталган үч катмарлуу түзүмдү сунуштайт. Эң төмөндө физикалык тармак турат: бул жерде топология — физикалык мейкиндик-убакыт, байланыш мыйзамы κ0 жана чек түзүмү салыштырмалуу катуу. Орто катмарда биологиялык тармак жайгашат: бул жерде эко-эволюциялык көп түрдүүлүк, Фишер маалымат метрикасы жана ыңгайлашуучу/модуляциялануучу байланыш түзүмү бар. Эң жогорку катмарда маданий/символдук тармак турат: бул жерде семантикалык мейкиндик, RKHS көрсөтүлүшү жана жогорку даражада пластикалык байланыш түзүмү алдыга чыгат.
Бул схеманын негизги билдирүүсү мындай: Системалар физикалыктан биологиялык жана маданий багытка өткөн сайын, абал мейкиндиктеринин топологиялык сезгичтиги жогорулайт. Физикалык системаларда геометрия өтө катуу жана энергиясы жогору шарттарга байланыштуу. Биологиялык системаларда тирүү уюшуу, экологиялык тармактар жана эволюциялык өз ара аракеттер абал мейкиндигин ийкемдүү кылат. Маданий системаларда болсо символдор, маанилер жана технологиялар ыктымалдуулук талааларын кыйла тез жана пластикалык түрдө өзгөртө алат.
Схема ошол эле учурда изилдөөнүн туура эмес түшүнүлүшүнө жол бербейт: Биологиялык жана маданий тармактар физикалык мейкиндик-убакыттын жаңы өлчөмдөрү эмес. Алар абстракттуу абал мейкиндиктери. Ошондуктан бул жерде колдонулган жалпы салыштырмалуулук окшоштугу физикалык гравитация эмес, математикалык форманын окшоштугу.
Эксперименттер кандай жүргүзүлгөн?
Бул изилдөө классикалык мааниде лабораториялык эксперимент же маалымат талдоосун сунуштабайт. Ал теориялык модель курат жана бул моделди кантип өлчөнө турган кылууга болорун талкуулайт. Биологиялык параметр B үчүн түрлөрдүн көптүгү, ген экспрессиясынын бөлүштүрүлүшү, метаболизм агымдары же экологиялык тармактар сыяктуу жогорку өлчөмдүү маалыматтардан Фишер маалымат метрикаларын чыгарууга болору сунушталат.
Маданий параметр C үчүн болсо символдук жана семантикалык тармактар колдонулушу мүмкүн. Заманбап чоң тил моделдери чыгарган семантикалык корреляция матрицалары, патент тармактары, түшүнүк тармактары же маданий текст топтомдору аркылуу Грам матрицасын түзүүгө болот. Бул матрицанын спектралдык энтропиясы маданий абал мейкиндиги канчалык жайылган, көп өлчөмдүү же бир өлчөмгө кулаганын өлчөө үчүн колдонулушу мүмкүн.
Изилдөө ошондой эле Кеч Плейстоцендеги жок болууну теориялык учурдук изилдөө катары карайт. Бул мезгилде мамонт талаасы сыяктуу экосистемалар адегенде салыштырмалуу туруктуу эко-эволюциялык геометрияга ээ болгон, андан кийин адамдын технологиялык агенттүүлүгү менен климаттык басым биргелешип бул геометрияны кайра масштабдаганы айтылат. Авторлор муну “геодезиялык кыйроо” деп аташат. Геодезия — геометриянын ичинде эң табигый же эң аз чыгымдуу жол. Геодезиялык кыйроо болсо мурда жеткиликтүү болгон эволюциялык ыңгайлашуу жолдорунун жабылышы.
Жыйынтыктар эмнени көрсөтөт?
Изилдөөнүн биринчи жыйынтыгы — физика, биология жана маданияттын ортосунда биримдик түзүү үчүн физикалык редукционизм милдеттүү эмес. Авторлор бул тармактарды бирдей материя деңгээлине түшүрбөйт. Анын ордуна ар башка тармактар өздөрүнүн абал мейкиндиктеринде окшош математикалык формалар менен моделдениши мүмкүн деп эсептешет.
Экинчи жыйынтык — агенттүүлүктү геометриялык түшүнүк катары чечмелөөгө болот. Системанын агенттүүлүгү жөн гана “бир нерсе жасай алуу” жөндөмү эмес; өзүнүн мүмкүн болгон абалдар мейкиндигин, эволюциялык багыттарын же семантикалык өтүү жолдорун ийе алуу жөндөмү.
Үчүнчү жыйынтык — биологиялык жана маданий системалар көбүрөөк пластикалык геометрияларга ээ. Физикалык байланыш өтө катуу жана сезгичтиги төмөн; биологиялык уюшуу көбүрөөк модуляцияланат; маданий/символдук системалар болсо маани тармактары аркылуу кыйла тез кайра түзүлө алат.
Төртүнчү жыйынтык — Кеч Плейстоцендеги жок болуу сыяктуу ири тарыхый окуяларды жөн гана “тышкы басым” же “климаттын өзгөрүшү” катары эмес, абал мейкиндигинде болгон түзүмдүк фазалык өтүүлөр катары да моделдөөгө болот. Адамдын технологиялык агенттүүлүгү экосистеманын ыңгайлашуу жолдорун тарылтып, айрым түрлөр үчүн жашоо багыттарын геометриялык жактан жаап салган болушу мүмкүн.
Бул эмне үчүн маанилүү?
Изилдөө тирүү системаларды жана маданий системаларды түшүндүрүү үчүн жаңы математикалык тил сунуштайт. Эгер биологиялык жана маданий процесстер абстракттуу абал мейкиндиктеринде геометриялык түрдө моделдене алса, эволюция, экология, маданият, технология жана маани тармактарынын ортосунда күчтүү жалпы алкак түзүлүшү мүмкүн.
Бул өзгөчө теориялык биология үчүн маанилүү. Эволюция жөн гана ген жыштыктарынын өзгөрүшү эмес, түрлөр менен экосистемалар өздөрүнүн мүмкүн болгон келечектерин өзгөрткөн мамилелик процесс катары каралышы мүмкүн. Тирүү организмдер айлана-чөйрөгө пассивдүү жооп берген объекттер эмес; өз ара аракеттенүү мейкиндиктерин кайра түзгөн уюштуруучулук борборлор.
Маданий системалар жагынан да изилдөө кызыктуу. Тилдер, технологиялар, илимий түшүнүктөр, идеологиялар жана символдук тармактар адамдар кайсы келечекти элестете аларына жана кайсы жүрүм-турум жолдорун мүмкүн деп көрөрүнө таасир этет. Ошондуктан маданият да абал мейкиндигинин бир түрдөгү геометриясын жаратат.
Бирок бул изилдөө айлана-чөйрө, климат же биологиялык коргоо саясаты боюнча түздөн-түз кеңеш катары окулбашы керек. Кеч Плейстоцендеги жок болуу мисалы теориялык моделдөө сунушу; чыныгы палеонтологиялык жана экологиялык түшүндүрмөлөр көп маалымат булагын, аймактык айырмачылыктарды жана тарыхый белгисиздиктерди камтыйт.
Эске ала турган жагдайлар
Изилдөө өтө дымактуу жана спекулятивдүү теориялык алкак сунуштайт. Жалпы салыштырмалуулуктун формаларын биологиялык жана маданий системаларга көчүрүү чыгармачыл сунуш; бирок ал негизги илимде калыптанган жана кеңири кабыл алынган модель эмес. Ошондуктан изилдөө даяр теория катары эмес, изилдөө программасынын сунушу катары окулушу керек.
Авторлор физикалык жана абстракттуу тармактарды бөлүүгө көңүл бурганы менен, жалпы салыштырмалуулуктун тили биология жана маданият тармагына көчүрүлгөндө туура эмес түшүнүү коркунучу бар. κbio же κcult, физикалык тартылуу талаасын өзгөртпөйт. Алар маалымат жана маани мейкиндиктеринде системанын геометриялык сезгичтигин билдирген абстракттуу параметрлер.
Айрым формулалар өлчөөгө болорун билдирет; бирок практикада бул метрикаларды ишенимдүү баалоо кыйын болушу мүмкүн. Фишер маалымат метрикаларын ген экспрессиясынын маалыматтарынан же экологиялык тармактардан чыгарууга болот; бирок маалыматтын сапаты, модель тандоо жана өлчөмдү азайтуу ыкмалары жыйынтыктарга күчтүү таасир этет. Ушундай эле маданий семантикалык мейкиндиктин спектралдык энтропиясы колдонулган тил моделине, текст топтомуна жана өзөк функциясына жараша өзгөрүшү мүмкүн.
Кеч Плейстоцендеги жок болуу мисалында адамдын технологиялык агенттүүлүгүнүн таасирин геометриялык фазалык өтүү катары чечмелөө түшүндүрмө бере алат; бирок бул климаттын өзгөрүшү, жашоо чөйрөсүнүн өзгөрүшү, аңчылык басымы, оорулар жана аймактык экологиялык айырмачылыктар сыяктуу башка факторлорду жокко чыгарбайт.
Жыйынтык
Бул изилдөө физикалык аалам, тирүү системалар жана маданий/символдук түзүмдөрдүн ортосунда жаңы математикалык үзгүлтүксүздүк түзүүгө аракет кылат. Негизги тезиси — уюштуруучулук агенттүүлүктү өзүнүн абал мейкиндигинин геометриясын ийе алуу жөндөмү катары түшүнүүгө болот. Бул үчүн жалпы салыштырмалуулуктагы κ байланыш идеясы физикалык гравитациянын сыртына чыгарылбастан, абстракттуу биологиялык жана маданий абал мейкиндиктери үчүн формалдык изоморфизм катары кеңейтилет.
Изилдөөнүн эң күчтүү жагы — физикалык редукционизмге түшпөстөн жалпы математикалык тил издегенинде. Биологиялык системаларды Фишер маалымат геометриясы менен, маданий системаларды болсо Гильберт мейкиндиги жана спектралдык энтропия менен моделдөөгө болот. Ошентип, “тирүүлүк” жана “маданият” жөн гана материалдык бөлүктөрдүн жыйындысы эмес, өздөрүнүн ыктымалдуулук мейкиндиктерин өзгөрткөн уюшулган системалар катары каралат.
Verianla окурманы үчүн негизги билдирүү мындай: Тирүү организмдер жана маданияттар жөн гана чөйрөдө кыймылдабайт; алар өздөрүнүн мүмкүн болгон келечектеринин геометриясын да өзгөртүшөт. κ параметри бул өзгөрүүнү өлчөөгө аракет кылган тайманбас, теориялык жана талкууга ачык математикалык көпүрө сунуштайт.
Булак жана ыкма жөнүндө эскертүү
Бул макала Richard A. Fariña жана Sebastián Vallejo тарабынан даярдалган “κ and the Geometry of Agency: Towards an Extended General Relativity of Living and Symbolic Systems” аттуу preprint изилдөөнүн негизинде даярдалган. Изилдөө Biorelativity изилдөө программасынын алкагында жалпыланган κ байланыш параметри, маалымат геометриясы, RKHS, биологиялык жана маданий абал мейкиндиктери жана Кеч Плейстоцендеги жок болуу мисалы аркылуу теориялык алкак иштеп чыгат.
Бул мазмун сөзмө-сөз котормо эмес; изилдөөнүн негизги идеясы Verianla редакциялык багытына ылайык жөнөкөйлөштүрүлүп, оригиналдуу кыргызча редакциялык макалага айландырылган.
Бул мазмун айлана-чөйрө саясаты, биологиялык коргоо стратегиясы же физикалык теорияны ырастоо боюнча түздөн-түз сунуш эмес. Изилдөө рецензиядан өтпөгөн теориялык preprint болгондуктан, кылдат чечмелениши керек.
Пикир калтырыңыз
E-mail дарегиңиз жарыяланбайт. Милдеттүү талаалар * менен белгиленген