

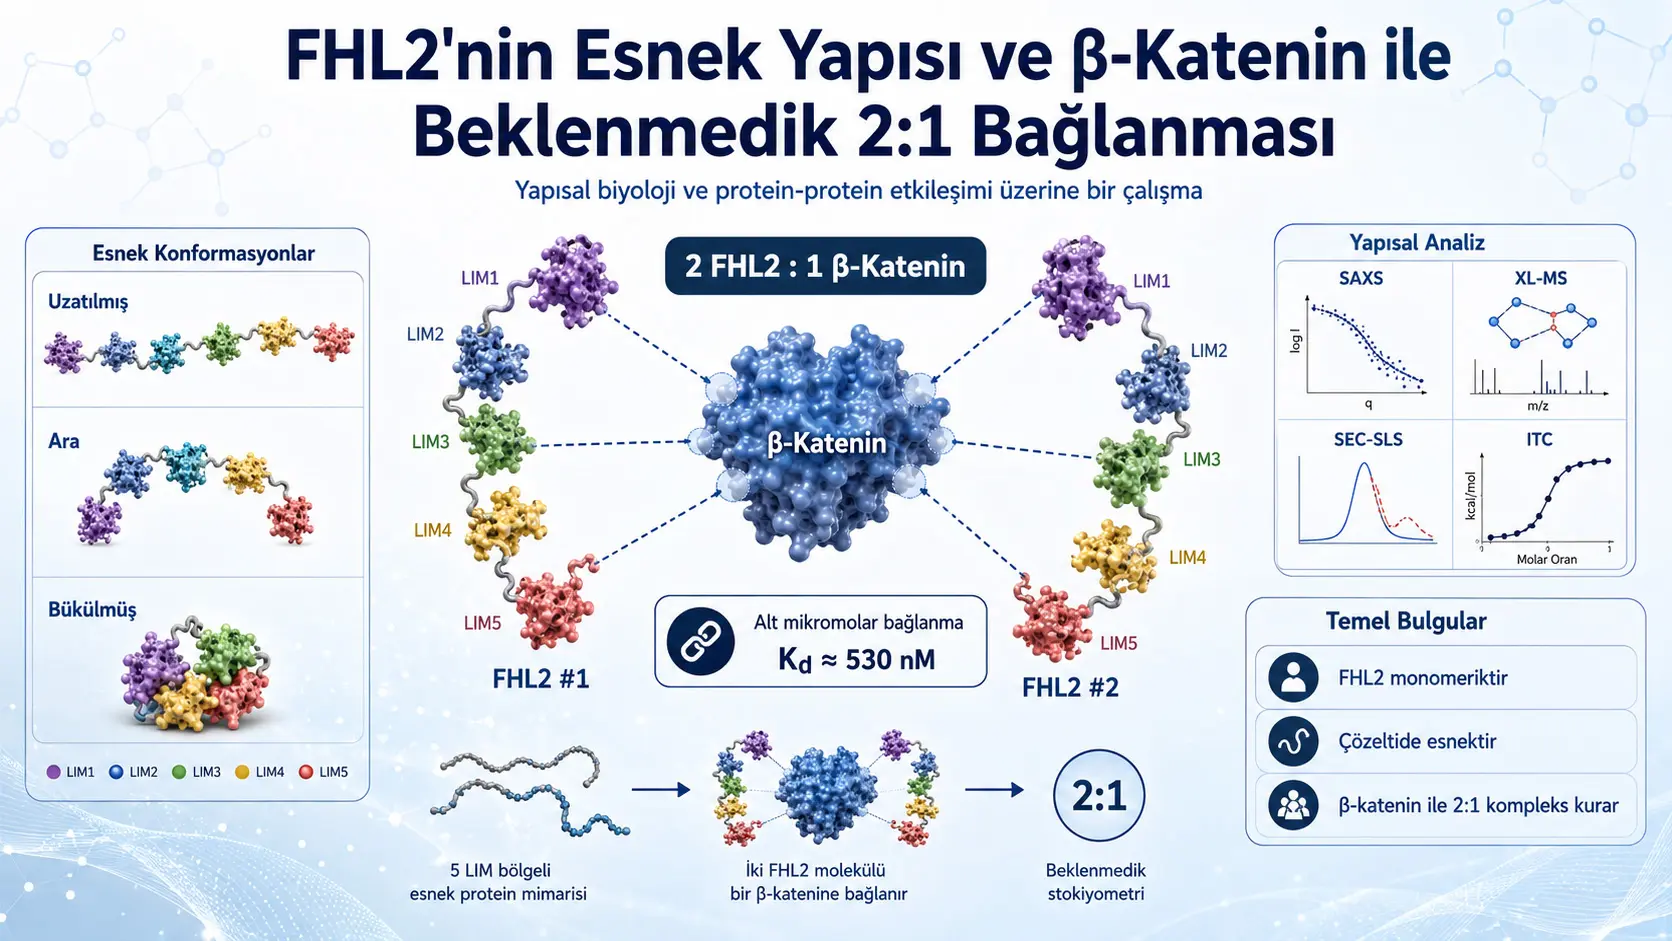
Төрт жарым LIM домендүү протеин 2, кыса адыйла FHL2, клетка үчүнде чок саныда протеини бирбирине баглайабмененн модүлер бир дүзенлейижи протеиндир. Хүжре искелети, ген экспрессиясы жана клеткалык сигнал жолдору арасында багланты курабмененн FHL2’нин 90’дан көп өз ара аракеттенүүчү өнөктөш аныкталган. Бунунла бирликте толук узакдуктагыки FHL2 протеининин йетерли миктарда, эрүүчү жана түзүлүшсал анализлере уйгун бичимде үретилмеси узак мөөнөтдир гүчтүр. Бул зорлук, протеинин тамамынын чөзелтиде насыл даврандыгыны жана β-катенин гиби өнемли ортакларына ханги молекулярдык дүзенле багландыгыны анламайы сынырландырмыштыр.
Тина Логондер, Уроš Преšерн жана Алжаž Габер тарафындан йүрүтүлен изилдөөда, толук узакдуктагы жана сон ашамада фьюжн теги ташымайан FHL2 протеининин Есжхерижхиа жоли бактериялеринде миллиграмм масштабында үретилмесини саглайан бир ыкма гелиштирилмиштир. Изилдөөжылар фарклы эрүүчүлүк етикетлерини каршылаштырмыш, сфGFP фьюжнунун ен жогорку эрүүчү протеин миктарыны сагладыгыны гөстермиш жана FHL2’нин цинк камтыган LIM домендеринын догру бүктөлүүсыны дестеклемек үчүн үретим ортамындаки ZnCl2 деңгээлини оптимизе етмиштир.
сфGFP етикети, FHL2’нин бактериялердеки жалпы ифаде деңгээлини болжол менен 7 кат, эрүүчү фракциядаки катышыны болжол менен 6,2 кат артырмыштыр. Чөзүнүр FHL2 миктарындаки жалпы өсүш, Хис етикетли FHL2’нин эрүүчү фракцияуна боюнча 45,3 ± 8,5 кат катары эсептелген. Чинко дестеги эрүүчү протеин үретимини артырыркен жогорку цинк деңгээллери бактерия бүйүмесини азалтмыштыр. Чөзүнүр протеин маалыматми менен клетка бүйүмеси бирликте маанилендирилдигинде 250 жана 500 µМ ZnCl2 ен уйгун аралык катары белирленмиш, чоң өлчекли үретимде 250 µМ пайдаланылган.
Сафлаштырма аягында болжол менен йүзде 90 сафлыкта, 19 мг/мЛ’йе кадар йогунлаштырылабмененн жана культураүн литреси башына болжол менен 5,9 мг тегсиз FHL2 елде едилмиштир. Даиресел дикроизм өлчүмлери, сафлаштырылмыш протеинин икинжил түзүлүш ичеригинин AlphaFold модельинден хесапланан маанилерле ылайык экенин гөстермиштир. Статик ышык сачылымыйла бирлештирилмиш өлчөм боюнча ажыратуучу хроматография исе FHL2’нин чөзелтиде есас катары тек молекүллү, йани мономердик абалда булундугуну гөстермиштир.
Күчүк ачылы X-ышыны сачылымы жыйынтыклары, FHL2’нин серт жана догрусал бир чубук гиби давранмадыгыны ортайа коймуштур. Денейсел айлануу радиусу 37,8 Å, максималдуу молекулярдык өлчөм 137 Å катары өлчүлмүштүр. Тамамен созулган AlphaFold модельинде бул маанилер сырасыйла 50,7 жана 177 Å’дыр. Бул фарк, чөзелтидеки FHL2 молекүллеринин өнемли бир бөлүмүнүн созулган бичимден дагы компакттуу жана бүкүлгөн конформациялар алдыгыны көрсөтөт.
SAXS жана чапраз баглама-масс-спектрометрия маалыматлеринин бирликте кулланылдыгы бүтүнлештирижи модельлеме, тек бир сабит түзүлүш йерине бирбирине дөнүшебмененн түзүлүшсал топлулукларын варлыгыны дестеклемиштир. Фарклы модель амененлеринде FHL2 молекүллеринин йүзде 35–57’си созулган, йүзде 11–34’ү компакттуу бичимде бүкүлгөн, гери калан йүзде 12–54’ү исе ара конформацияларда сыныфландырылмыштыр. Бул еснеклик, FHL2’нин фарклы протеин ортакларына же айны анда бирден көп еткмененшим йүзейине уйум саглайабмененн молекулярдык бир искеле гиби изилдөөсыны ачыклайабилир.
Изилдөөнын ен диккат чекижи сонужу, FHL2 менен β-катенин арасындаки комплексин байланыш катышыдыр. Бойут дышлама хроматографияси, статикалык жарык чачыроосу жана изотермалык титрлөө калориметриясы жыйынтыклары; бир β-катенин молекүлүне ики FHL2 молекүлүнүн багланабилдигини гөстермиштир. Комплексин денейсел молекулярдык күтлеси 140,2 кДа катары өлчүлмүш; бул маани 1:1 комплекс үчүн бекленен 117,7 кДа’дан жогорку, ики FHL2 жана бир β-катенинден олушан комплекс үчүн хесапланан 149,8 кДа’йа йакын табылган.
Калориметри өлчүмлеринде байланыш стехиометрияси 2,040 ± 0,001, ажыроо константасы исе 530 ± 30 нМ катары белирленмиштир. Бул маани, еткмененшимин микротыныгуурын алтында бир байланыш гүжүне сахип экенин көрсөтөт. Еткмененшим күчтүү жана елмаалыматшли молекулалар аралык контактларла дестеклениркен, комплекс олушуму сырасында протеинлерин харекет өзгүрлүгүнүн азайышы энтропиялык бир бедел мейдана гетирмиштир.
Изилдөө, FHL2’нин ракде кесикн катары дарылоо едмененбилир бир максат экенин же 2:1 комплексин түм клеткалерде айны бичимде олуштугуну гөстерэмчекктедир. Изилдөө, сафлаштырылмыш рекомбинанттык протеинлерле түзүлүшлан лаборатувар денейлерине жана түзүлүшсал модельлемейе дайанмактадыр. Хүжре үчүнде комплексин герчек заманлы түзүлүшсы, байланыш йүзейлери, ики FHL2 молекүлүнүн айны мы йокса фарклы бөлгелерден ми багландыгы жана бул дүзенин ген экспрессиясыни насыл өзгөртирдиги азырынча түздөн-түз гөстерилмемиштир.
FHL2 насыл бир протеиндир?
FHL2’нин там ады “Four-and-a-half LIM domains протеин 2”, Түркче каршылыгыйла төрт жарым LIM домендүү протеин 2’дир. Протеин, бир йарым LIM домени менен дөрт там LIM домениндан олушан беш модүлер бөлүме сахиптир. Изилдөөдаки түзүлүшсал гөстеримлерде бул бөлүмлер LIM0, LIM1, LIM2, LIM3 жана LIM4 катары адландырылмыштыр.
Хер там LIM домени ики ардышык цинк манжасындан мейдана гелир. Йарым LIM домени исе тек бир цинк манжасы камтыйт. Бөйлеже толук узакдуктагыки FHL2’де жалпы докуз цинк манжасы булунур. LIM домендери арасында болжол менен докуз амино аситлик кыса жана еснек баглайыжы дизмененр камтылган.
Бурадаки “цинк манжасы” ифадеси, класик DNA’йа багланан цинк манжасы протеинлерийле карыштырылмамалыдыр. FHL2’нин LIM домендери темел катары нүклеик аситлере байланышк үчүн эмес, протеин-протеин еткмененшимлерини курмак үчүн кулланылыр. Чинко ийонлары, аланларын үч бойутлу түзүлүшсыны коружарак протеинин дүзгүн бүктөлүүсына йардымжы олур.
FHL2’нин 90’дан көп өз ара аракеттенүүчү өнөктөш кабарланган. Бунлар арасында:
- Транскрипсийон фактөрлери жана транскрипция йардымжылары,
- Хүжре зары ресептөрлери,
- Хүжре искелети протеинлери,
- Ензимлер,
- Синйал йолу бмененшенлери булунмактадыр.
Бу гениш еткмененшим агы FHL2’йи, кенди башына тек бир ферментатик реакция герчеклештирен протеинден чок, фарклы протеинлери айны жөнгө салуучу чөйрөда бир арайа гетирен бир адаптөр же искеле протеини хâлине гетирир.
FHL2 менен рак арасындаки илишки себеп кармашыктыр?
FHL2’нин клеткалык ишлеви булундугу докуйа, клетка типине, еткмененшим ортакларына жана еткинлешен сигнал жолуна боюнча өзгөребилир. Изилдөөда өзетленен литератүре боюнча FHL2 базы раклерде түмөрү дестеклейен бир онкоген гиби, базы багламларда исе шишик басаңдатуучу бир протеин гиби давранабилмектедир.
Эмчек рагынин белирли BRCA1 байланыштуу бичимлеринде жана хепатоселүлер ракде FHL2 ифадесинин азалдыгы кабарланган. Буна каршылык ашказан, колоректалдык, чакан клеткали дышы өпкө, жатын моюнчасы, энелик без, простата, уйку бези дуктал аденокарсиному, меланома жана базы лейкоз түрлеринде арткан FHL2 ифадеси отчет едилмиштир. Базы эмчек, колон жана өпкө раки изилдөөларында жогорку FHL2 деңгээли көтү прогнозла илишкмененндирилмиштир.
Анжак бул билгмененр, учурдагы денейин йени клиникалык жыйынтыклары эмес. Изилдөөжылар бейтап өрнеклерини, түмөр бүйүмесини же дарылоо йанытыны өлчмемиштир. Изилдөөнын рак ачысындан өнеми, FHL2’нин β-катенин менен курдугу түзүлүшсал илишкинин Wnt/β-катенин сигнал жолуну анламайа йардымжы олабмененжек олмасыдыр.
Wnt/β-катенин сигнал жолунда FHL2’нин йери
β-катенин, клетка түзүлүшшмасы жана ген экспрессиясынин дүзенленмеси гиби ики өнемли ишлеве сахип бир протеиндир. Wнт сигнал жолу еткинлештигинде β-катенинин клетка үчүндеки миктары, фосфорланууу, парчаланмасы жана клетка чекирдегине ташынмасы өзгөребилир. Чекирдекте бирикен β-катенин, белирли максат генлерин ифадесини еткмененйебилир.
FHL2’нин β-катенине түздөн-түз багландыгы, β-катенинин фосфорлануууну жана клетка үчүндеки конумуну еткмененйебилдиги дагы мурда кабарланган. Бунунла бирликте ики протеинин ханги йүзейлерден багландыгы конусуунда мурдаки изилдөөлар там катары уйушмамыштыр.
Бир изилдөө β-катенинин Н-уч бөлгеси менен илк армадилло кайталанышынын герекли экенин билдириркен, башка бир изилдөө ARM1–9 бөлгесини жана өзелликле ARM3–8 текрарларыны өне чыкармыштыр. Айрыжа FHL2’нин LIM домендериндан херханги биринин силинсультсинин еткмененшими жидди бичимде азалтабилдиги кабарланган.
Бу анлашмазлыкларын өнемли себеплеринден бири, мурдаки изилдөөларда толук узакдуктагы олмайан β-катенин парчаларынын же GST жана MBP гиби чоң фьюжн етикетлери ташыйан FHL2 өрнеклеринин колдонулушу болушу мүмкүн. Бүйүк бир етикет, протеинин еснеклигини сынырлайабилир, байланыш йүзейини өртебилир же комплексин герчек молекулярдык агырлыгыны йорумламайы зорлаштырабилир.
Темел текник проблем: Там узаклуктаки FHL2 себеп зор үретилийор?
Бир протеинин түзүлүшсыны жана еткмененшимлерини текшерүүк үчүн мурдаликле йетерли миктарда, эрүүчү жана догру катланмыш протеин елде едилмеси герекир. FHL2 ачысындан бул ашама өзелликле зордур. Бунун негизги себеплери шунлардыр:
- Протеин чок саныда цинк координасйон бөлгеси камтыйт.
- Чинко йетерсизлиги LIM домендеринын ексик бүктөлүүсына йол ачабилир.
- Йанлыш катланан протеинлер бактерияде эримеген күмелер олуштурабилир.
- FHL2’нин аланлар арасы еснеклиги, протеини агрегацияа ачык хâле гетиребилир.
- Чөзүнүрлүгү артыран чоң етикетлер чыкарылдыгында протеин йениден чөкелебилир.
Изилдөөжыларын илк тегсиз FHL2 үретме гиришимлери башарысыз болгон. Дүшүк сыжаклык жана фарклы ZnCl2 деңгээллери дененмесине рагмен протеин чогунлукла эримеген фракцияда калган. Чөзүнмейен протеини йениден катлама гиришимлери де маанилүү миктарда эрүүчү FHL2 сагламамыштыр.
Фарклы фьюжн етикетлери насыл каршылаштырылды?
FHL2’нин эрүүчүлүгүнү артырмак амажыйла дөрт фарклы түзүлүш каршылаштырылмыштыр:
- HT-FHL2: Хис теги ташыйан FHL2,
- GST-FHL2: Глутатйон С-трансфераз менен бирлештирилмиш FHL2,
- MBP-FHL2: Малтоз баглайыжы протеин менен бирлештирилмиш FHL2,
- сфGFP-FHL2: Сүпер катланан йешил флоресан протеин менен бирлештирилмиш FHL2.
Шекил 1А’даки wестерн блот гөрүнтүлери, хер түзүлүшнын эрүүчү жана эримеген фракциялардаки дагылымыны көрсөтөт. GST жалпы ифаде деңгээлини артырмыш, бирок эрүүчүлүк катышыны иймененштирмемиштир. Хатта GST-FHL2’нин эрүүчү фракциядаки пайы Хис етикетли түзүлүшйа боюнча дагы төмөн калган.
MBP жалпы ифаде миктарыны белиргин бичимде өзгөртирмемиш, бирок эрүүчү протеин катышыны 2,5 ± 0,7 кат артырмыштыр. Ен чоң гелишме сфGFP фьюжнунда байкалган:
- Топлам ифаде деңгээли 7,0 ± 0,7 кат арткантыр.
- Чөзүнүр фракция катышы 6,2 ± 1,6 кат арткантыр.
- Чөзүнүр протеин миктарындаки жалпы өсүш 45,3 ± 8,5 ката улашмыштыр.
Бу жыйынтыклар себепийле чоң өлчекли үретим үчүн сфGFP-FHL2 түзүлүшсы сечилмиштир. сфGFP бурада нихаи деней протеининин бир парчасы катары быракылмамыш; үретим жана бүктөлүү ашамасында йардымжы олдуктан кийин TEV протеазаыйла кесиклерек узаклаштырылмыштыр.
Чинко себеп гереклийди жана себеп сынырсыз артырыламады?
FHL2’нин докуз цинк манжасы ичердиги дүшүнүлдүгүнде, клетка үчүнде йетерли Зн2+ булунмасы догру бүктөлүү ачысындан өнемлидир. Изилдөөжылар үретим ортамына 0, 100, 250, 500 жана 1.000 µМ ZnCl2 еклейерек эрүүчү сфGFP-FHL2 миктарыны каршылаштырмыштыр.
ZnCl2 екленмеси жалпы протеин ифадесини белиргин бичимде өзгөртирмемиш, бирок эрүүчү фракциядаки протеин миктарыны артырмыштыр. Иймененшме 100 µМ деңгэколунда башламыш, 250 жана 500 µМ деңгээллеринде дагы күчтүү хâле гелмиштир.
Бунунла бирликте цинк бактериялер үчүн жогорку концентрацияларда токсиктир. Шекил 1Е’де үретим аягында өлчүлен ОД600 маанилери, ZnCl2 деңгээли арттыкча бактерия бүйүмесинин азалдыгыны көрсөтөт. Ен күчтүү бүйүме кайбы 1.000 µМ’де байкалган.
Ошондуктан болгону клетка башына үретмененн эрүүчү протеине эмес, бир литре культураден елде едмененбмененжек жалпы эрүүчү протеине бакылмыштыр. Шекил 1Ф’деки салыштыруу 250 жана 500 µМ ZnCl2 деңгээллеринин ен уйгун денгейи сагладыгыны гөстермиштир. Бүйүк өлчекли үретимде клетка бүйүмесини дагы аз баскылайан 250 µМ деңгээли сечилмиштир.
Сафлаштырма мөөнөтжи насыл мененрледи?
FHL2, 18°Ж’де геже бойунжа ифаде едилмиштир. Дүшүк сыжаклык, бактерияде сентезленен протеинин дагы йаваш жана догру бүктөлүүсына йардымжы олмак амажыйла пайдаланылган.
Сафлаштырма сырасы шу шекилде йүрүтүлмүштүр:
- Хис теги ташыйан сфGFP-FHL2 илк иммобилизе метал афините хроматографиясийле йакаланмыштыр.
- TEV протеазаы екленерек сфGFP менен FHL2 арасындаки баг кесиклмиштир.
- Кесим сырасында өрнек геже бойунжа диализ едилмиштир.
- Хис теги ташыйан сфGFP жана TEV протеазаы икинжи метал афините колонунда тутулмуштур.
- Етикетсиз FHL2 акыш фракцияунда топланмыштыр.
- Сон сафлаштырма жана буфер өзгөрими өлчөм боюнча ажыратуучу хроматографияйле герчеклештирилмиштир.
TEV кесикми жана диализ сырасында өнемли миктарда чөкелме мейдана гелмиш, центрифугаден кийин 280 нм абсорбансында болжол менен йүзде 50 азаюу байкалган. Бул абал, сфGFP’нин болгону үретими эмес, базы FHL2 молекүллеринин эрүүчү калмасыны да дестекледигини; етикет узаклаштырылдыгында йанлыш катланмыш же карарсыз молекүллерин чөкелебилдигини дүшүндүрмектедир.
Буна рагмен калан эрүүчү протеин болжол менен йүзде 90 сафлыга улаштырылмыш, 19 мг/мЛ’йе кадар йогунлаштырылмыш жана культураүн литреси башына болжол менен 5,9 мг тегсиз FHL2 елде едилмиштир. Бул миктар, SAXS, калориметри жана масс-спектрометрия гиби ыкмалерин уйгуланмасына йетерли болгон.
Сафлаштырылан FHL2 герчектен догру катланмыш мыйды?
Даиресел дикроизм, протеинлердеки алфа хеликс жана бета катмар гиби икинжил түзүмдөрүн болжол менен катышларыны өлчмек үчүн кулланылыр. Денейсел ЖД маалыматлеринин айрыштырылмасы сонужунда:
| Икинжил түзүлүш | Денейсел маани | AlphaFold модельинден болжол |
|---|---|---|
| Алфа хеликс | %14,2 | %13,6 |
| Антипаралел бета катмар | %23,1 | %24,4 |
Денейсел жана хесапланан катышларын бирбирине йакын олмасы, сафлаштырылмыш FHL2’нин икинжил түзүлүшсынын генел катары бекленен бүктөлүүйла ылайык экенин гөстермиштир.
FHL2 чөзелтиде мономер ми, димер ми?
Бойут дышлама хроматографиясинде ана мономер пикинден мурда чыкан чакан бир ек пик көзленмиштир. Бул эрте пик болжол менен 64,4 кДа’лык бир түзүлүшйа каршылык гелдигинден илк бакышта FHL2 димери олабмененжеги дүшүнүлмүштүр.
Герчек бир мономер-димер денгеси булунуйорса протеин концентрацияу йүкселдигинде димер миктарынын артмасы жана буна каршылык мономер катышынын азайышы бекленир. Изилдөөжылар бул оласылыгы сынамак үчүн FHL2’йи 1–7 мг/мЛ, йани болжол менен 31–218 µМ аралыгында SEC-SLS менен инжелемиштир.
Еркен чыкан пик протеин концентрацияуйла бирликте арткан, бирок мономер пикинде каршылык гелен бир азаюу гөрүлмемиштир. Мономер жана эрте пик арасындаки боюнчали дагылым тест едмененн концентрацияларда өзгөрмемиштир. Ошондуктан эрте пик, чөзелтиде денгели бичимде олушуп айрышан герчек бир FHL2 хомодимери катары йорумланмамыштыр.
Ана пикин өлчүлен молекулярдык күтлеси теорик 32,2 кДа мааниине йакын булунмуш жана FHL2’нин чөзелтиде агырлыклы катары мономер экени сонужуна варылмыштыр.
SAXS, FHL2’нин еснеклигини насыл гөстерди?
Күчүк ачылы X-ышыны сачылымы, протеинлери кристаллештирмеден чөзелтидеки генел бойутлары, шекиллери жана еснекликлери хаккында билги саглар. Бул ыкма хер атомун кесикн конумуну тек башына белирлемез; факат молекүлүн компакттуу мы, созулган мы же еснек ми экенин ортайа койабилир.
Шекил 3А’даки Краткй графигинде FHL2’нин ийриси, серт жана күресел бир протеин олан BSA’нын чан бичимли профилинден белиргин шекилде айрылмыштыр. FHL2 ийрисинин жогорку маанилерде гениш бичимде девам етмеси, протеинин өнемли дережеде еснек экенин көрсөтөт.
AlphaFold модельинин тамамен созулган түзүлүшсындан хесапланан теорик SAXS ийриси денейсел маалыматйе ийи уйум гөстермемиштир. Тек модель уйумундаки χ2 маании 15,231’дир. Бул жогорку уйумсуузлук, чөзелтидеки бүтүн FHL2 молекүллеринин тек жана там созулган бир түзүлүш катары темсил едмененмейежегини көрсөтөт.
Рг жана Дмаx маанилери не анлатыйор?
Дөнме йарычапы, Рг, молекулярдык күтленин меркез айланасинде не кадар йажылдыгыны ифаде едер. Бүйүк Рг маании генелликле дагы созулган, чакан маани исе дагы компакттуу бир түзүлүшйа ишарет едер.
Максимум бойут, Дмаx, молекүлдеки бирбиринден ен узак ики нокта арасындаки болжол менен ен чоң месафейи темсил едер.
| Параметре | Денейсел FHL2 | Там созулган AlphaFold модельи |
|---|---|---|
| Рг | 37,8 Å | 50,7 Å |
| Дмаx | 137 Å | 177 Å |
Хер ики денейсел мааниин де созулган модельден чакан олмасы, чөзелтидеки протеинин орталама катары дагы кыса жана дагы компакттуу бир түзүлүш топлулугу олуштурдугуну көрсөтөт.
Чифтлер арасы узаклык дагылымында 22,5 Å живарында белиргин бир тепе көзленмиштир. Бул месафе тек бир LIM доменинын карактеристик бойутуйла ылайыкдур. Дагылымын 137 Å’йе кадар узак бир куйрук олуштурмасы исе FHL2’нин тамамен күресел эмес, генел катары созулган факат фарклы дережелерде бүкүлебмененн чок аланлы бир мимарийе сахип экенин көрсөтөт.
Тек бир түзүлүш йерине себеп “конформация топлулугу” кулланылды?
Еснек протеинлер чөзелтиде тек бир сабит бичимде дурмаз. Айны протеин молекүлү заман үчүнде дагы ачык, дагы бүкүлгөн же ара түзүлүшлара кечебилир. Ошондуктан еснек бир протеини болгону тек бир үч бойутлу модельле түшүндүрмөк йанылтыжы болушу мүмкүн.
Изилдөөжылар SAXS маалыматлерини, чапраз баглама-масс-спектрометрияйле елде едмененн месафе кысытламаларыйла бирлештирмиштир. XL-MS ыкмаинде протеинин бирбирине йакын бөлгелери химиялык катары чапраз багланыр. Даха кийин ханги амино асит чифтлеринин багландыгы масс-спектрометрияйле белирленир. Бир модельде ики калынты чапраз баглайыжынын улашабмененжегинден чок узакса модель о денейсел кысытламайла ылайык эмес.
Моделлеме үчүн ики RRT өрнеклемеси жана бир BioEmu өрнеклемеси пайдаланылган. Бул үч йаклашым сырасыйла болжол менен 10.315, 10.404 жана 9.461 фарклы FHL2 конформацияу үретмиштир. Бөйлеже болжол менен 30 бин фарклы түзүлүшсал оласылык маанилендирилмиштир.
Моделлер SAXS ийрисине уйум жана XL-MS кысытламаларыны каршылама дережелерине боюнча пуанланмыштыр. Бүтүнлештирилмиш пуаны 0,887 же үзеринде олан 104 топлулук сечилмиш, дагы кийин түзүлүшсал бензерликлерине боюнча 28 фарклы топлулуга жана сон ашамада беш ана амененйе айрылмыштыр.
Беш түзүлүшсал аменен не гөстерди?
Шекил 4’те бир, ики, дөрт, он дөрт жана йирми беш нумаралы лидерлерин темсил еттиги беш топлулук амененси көрсөтүлгөн. Бул амененлерин SAXS уйумларындаки χ2 маанилери 2,302 менен 2,512 арасында өзгөрмиштир. Бул маанилер, тек созулган AlphaFold модельинин 15,231’лик мааниине боюнча чок дагы ийи уйуму көрсөтөт.
Хер бир топлулук, 46 XL-MS чапраз багынын йүзде 57,4–69,6’сыны айны анда каршыламыштыр. Тек бир топлулугун бүтүн чапраз баглары каршылайамамасы, протеинин мөөнөткли харекет еден түзүлүшсыйла ылайыкдур. Фарклы топлулуклар бирликте маанилендирилдигинде 46 чапраз багын 43’ү ен аз бир топлулук тарафындан каршыланмыштыр. Йалнызжа болжол менен йүзде 6’лык бөлүм ачыкланамамыштыр.
Моделлер Рг маанилерине боюнча үч груба айрылмыштыр:
- Бүкүлмүш конформация: Рг, AlphaFold модельинин йүзде 75’инден чакан; болжол менен 38,0 Å’нин алтында.
- Узатылмыш конформация: Рг, AlphaFold модельинин йүзде 90’ындан чоң; болжол менен 45,6 Å’нин үзеринде.
- Ара конформация: Бул ики сыныр арасында калан түзүлүшлар.
Беш топлулук амененсине боюнча дагылымлар шу аралыкларда табылган:
- Узатылмыш конформациялар: %35–57,
- Компакт жана бүкүлгөн конформациялар: %11–34,
- Ара конформациялар: %12–54.
Бу жыйынтык, FHL2’нин заманын болжол менен йарысында созулган бичимлер алабилмесине рагмен болгону дүз жана серт бир чубук олмадыгыны көрсөтөт. Молекүллерин маанилүү бир бөлүмү кенди үзерине догру бүкүлебилмектедир.
Еснеклик FHL2’нин ишлеви үчүн себеп өнемли болушу мүмкүн?
FHL2’йи фарклы багланты нокталарына сахип еснек бир молекулярдык кол катары дүшүнмек мүмкүндүр. Серт бир чубук болгону белирли геометрмененре сахип протеинлере багланабилир. Еснек бир протеин исе аланлары арасындаки ачылары өзгөртиререк фарклы чоңлүктеки жана фарклы конумдаки ортаклара уйум саглайабилир.
FHL2’нин дөрт там жана бир йарым LIM домени, фарклы протеинлери айны анда тутабмененжек чоклу еткмененшим йүзейлери олуштурабилир. Аланлар арасындаки кыса баглайыжылар протеине сынырсыз эмес, контроллү бир еснеклик сагламактадыр. Бул өзеллик:
- Бирден көп протеинин айны комплекс үчүнде бир арайа гетирилмесини,
- Фарклы синйал йолларында фарклы байланыш дүзенлеринин курулмасыны,
- Багланма сырасында протеинин дагы дүзенли бир түзүлүшйа кечмесини,
- Узак бөлгелер арасында кечижи темасларын олушмасыны саглайабилир.
Анжак изилдөө, белирли бир конформацияун белирли бир клеткалык ишлеви түздөн-түз герчеклештирдигини гөстермемиштир. Еснеклигин искеле ишлевини колайлаштырдыгы йоруму денейсел маалыматлерле ылайык бир меканистик түшүндүрмөдыр.
FHL2 менен β-катенин арасындаки түздөн-түз еткмененшим насыл гөстерилди?
Илк катары FHL2 жана β-катенин айры айры жана карышым хâлинде өлчөм боюнча ажыратуучу хроматографияне колдонулган. Ики протеин бирликте маалыматлдигинде дагы төмөн елүсйон хажминде йени бир пик ортайа чыкмыш, айры протеинлере аит пиклерин чоңлүгү азайгантыр.
Бойут дышлама хроматографиясинде чоң молекулярдык комплекслер колондан дагы эрте чыкар. Ошондуктан йени пикин төмөн елүсйон хажминде ортайа чыкмасы, FHL2 менен β-катенинин дагы чоң бир комплекс олуштурдугуну көрсөтөт.
Йени пиктен алынан фракцияларын SDS-PAGE анализинде хем β-катенин хем де FHL2 бантлары байкалган. Бул жыйынтык ики протеинин айны хроматография фракцияунда бирликте булундугуну жана карарлы бир комплекс олуштурдугуну догруламыштыр.
Бекленмедик 2:1 стехиометрия насыл белирленди?
SEC-SLS ыкмаи, хроматография пикинден кечен молекүллерин ышыгы сачма өзелликлерини кулланарак молекулярдык күтлейи түздөн-түз болжол едер. Изилдөөда өлчүлен жана теорик маанилер шу шекилдедир:
| Өрнек | Өлчүлен молекулярдык күтле | Теорик молекулярдык күтле |
|---|---|---|
| FHL2 | 35,0 кДа | 32,2 кДа |
| β-катенин | Йаклашык 80,2–80,5 кДа | 85,6 кДа |
| FHL2 + β-катенин комплекси | 140,2 кДа | 2 FHL2 + 1 β-катенин үчүн 149,8 кДа |
Бир FHL2 жана бир β-катенинден олушан 1:1 комплексин теорик күтлеси 117,7 кДа’дыр. Өлчүлен 140,2 кДа маании бул мааниден белиргин бичимде жогоркутир. Буна каршылык ики FHL2 жана бир β-катенин үчүн бекленен 149,8 кДа мааниине дагы йакындыр.
Ошондуктан комплексин баскын түзүлүшсынын:
\[ 2\,\mathrm{FHL2}+1\,\beta\text{-katenin} \]
экени сонужуна варылмыштыр. Бул гөстерим бир химиялык реакция денклеми эмес, комплексин молекулярдык бмененшимини ифаде еден стехиометрияк бир гөстеримдир.
Протеин катышы өзгөринже комплекс себеп өзгөрти?
FHL2 жана β-катенин концентрациялары өзгөртирилдигинде өлчүлен комплекс күтлеси де өзгөрмиштир:
- 4 мг/мЛ FHL2 + 4 мг/мЛ β-катенин: 140,2 кДа; 2:1 комплексле ылайык.
- 4 мг/мЛ FHL2 + 1 мг/мЛ β-катенин: 113,9 кДа; болжол менен 1:1 комплексле ылайык.
- 2 мг/мЛ FHL2 + 2 мг/мЛ β-катенин: Пик бойунжа болжол менен 125–135 кДа арасында өзгөрен күтле; 1:1 жана 2:1 дүзенлери арасында хетерожен бир топлулук.
Бу табылга, 2:1 комплексин олушумунун протеинлерин мутлак концентрацияуна жана бирбирлерине боюнча катышларына баглы олабмененжегини көрсөтөт. Комплекс, бүтүн кошулларда өзгөрмез тек бир түзүлүш катары булунмамыштыр.
ITC байланыш гүжүнү жана катышыны насыл догрулады?
Изотермал титрасйон калориметриси, ики молекүл багландыгында ачыга чыкан же алынан ысыйы өлчер. Изилдөөжылар 276 µМ FHL2’йи 13,8 µМ β-катенин камтыган клеткайе титре етмиш жана байланыш ийрисини тек тип байланыш бөлгелери модельийле маанилендирмиштир.
ITC жыйынтыклары:
| Параметре | Өлчүлен маани | Анламы |
|---|---|---|
| н | 2,040 ± 0,001 | Бир β-катенине болжол менен ики FHL2 байланышсы |
| Кд | 530 ± 30 нМ | Микротыныгуурын алтында, күчтүү түздөн-түз еткмененшим |
| ΔХ | −31,4 ± 0,2 кжал/мол | Багланмайы күчтүү бичимде дестеклейен елмаалыматшли энтальпия |
| −ТΔС | 22,8 кжал/мол | Харекет жана конформация өзгүрлүгү кайбынын олуштурдугу энтропиялык малийет |
| ΔГ | −8,57 кжал/мол | Генел байланыш мөөнөтжинин термодинамик катары елмаалыматшли олмасы |
Багланманын термодинамиги не анлатыйор?
Изилдөөдаки термодинамик маанилерин илишкисини түшүндүрмөк үчүн темел сербест енержи ешитлиги кулланылабилир:
\[ \Delta G=\Delta H-T\Delta S \]
Бурада:
- ΔГ, жалпы Гиббс эркин энергиясы өзгөримини,
- ΔХ, молекүллер арасы баглар жана темасларла байланыштуу энтальпия өзгөримини,
- Т, мутлак сыжаклыгы,
- ΔС, системин дүзенсизлик жана харекет өзгүрлүгүндеки өзгөрими ифаде едер.
Изилдөө жыйынтыклары −ТΔС мааниини 22,8 кжал/мол катары вермектедир. Бул гөстерим кулланылдыгында илишки шу шекилде окунабилир:
\[ \Delta G=\Delta H+(-T\Delta S) \]
\[ \Delta G\approx-31{,}4+22{,}8=-8{,}6\ \mathrm{kcal/mol} \]
Бу маани билдирмененн −8,57 кжал/мол сонужуйла ылайыкдур. Гүчлү терс ΔХ, FHL2 менен β-катенин арасында чок саныда елмаалыматшли молекулалар аралык контакт олуштугуну дүшүндүрүр. Позитиф −ТΔС исе байланыш сырасында протеинлерин харекет жана конформация өзгүрлүгүнүн азалдыгыны көрсөтөт.
Еснек FHL2’нин β-катенине багландыгында белирли конформациялара кысытланмасы, энтропиялык малийетин оласы түшүндүрмөларындан биридир. β-катенинин дүзенсиз Н- жана Ж-уч бөлгелеринин де комплекс олушуркен дагы дүзенли хâле гелмеси мүмкүндүр. Анжак изилдөө, байланыш кийинсы атомик түзүлүшйы чөзмедиги үчүн ханги бөлгелерин дүзенлендигини түздөн-түз гөстермемиштир.
Неден тек байланыш олайы гөрүлүркен катыш 2:1 чыкты?
ITC ийриси болжол менен ики FHL2’нин багландыгыны гөстермесине рагмен ики айры термодинамик кечиш жерине тек баскын байланыш олайы гөстермиштир. Изилдөөжылар буну, β-катениндеки ики FHL2 байланыш бөлгесинин бензер байланыш енержмененрине сахип олабмененжегийле түшүндүрмөктадыр.
Башка бир оласылык, илк FHL2’нин байланышсынын икинжи FHL2’нин байланышсыны колайлаштырмасы же комплекс үчүнде FHL2-FHL2 темасынын олушмасыдыр. Изилдөө бул сеченеклери бирбиринден айырмамыштыр.
2:1 комплекс үчүн ики темел модель гүндеме гетирилмиштир:
- β-катенин үзеринде айны анда ики айры FHL2 молекүлүнү тутан бирден көп байланыш йүзейи булунмасы,
- Бир FHL2 багландыктан кийин икинжи FHL2’нин комплекс үчүнде биринчи FHL2 менен илишки курмасы.
FHL2’нин тек башына концентрацияа баглы олигомерлешме гөстерэмчекси, икинжи оласылыгын бирок β-катенин тарафындан олуштурулан комплекс ортамында герчеклешебмененжегини дүшүндүрмектедир.
Өнжеки 1:1 сонужу менен бул изилдөөнын 2:1 сонужу себеп фарклы болушу мүмкүн?
Даха мурдаки бир ITC изилдөөсында FHL2 менен β-катенин үчүн 1:1 стехиометрия жана 1,08 µМ Кд кабарланган. Анжак о денейде:
- β-катенинин там узаклугу йерине 138–781 амино аситлик кесиклмиш бир түзүлүшсы,
- Етикетсиз FHL2 йерине MBP-FHL2 фьюжну пайдаланылган.
β-катенинин чыкарылмыш Н-уч бөлгеси икинжи бир байланыш йүзейине каткы саглыйор болушу мүмкүн. Бензер бичимде чоң MBP етикети, FHL2’нин бүкүлмесини же икинжи FHL2 молекүлүнүн комплексе йаклашмасыны стерик катары енгеллемиш болушу мүмкүн.
Мевжут изилдөө толук узакдуктагы β-катенин жана тегсиз толук узакдуктагы FHL2 кулланарак дагы догал бензери бир деней дүзени курмуштур. Бунунла бирликте бул жыйынтык да сафлаштырылмыш протеинлерин кулланылдыгы ин витро бир системден елде едилмиштир; клетка үчүндеки стехиометрия айрыжа догруланмалыдыр.
Шекил 1 не анлатыйор?
Шекил 1’ин сол бөлүмү фарклы фьюжн етикетлеринин FHL2 үретимине еткисини көрсөтөт. Wестерн блот бантлары жана бунлардан хесапланан чубук графиклер, сфGFP’нин хем жалпы ифаде хем де эрүүчү фракция ачысындан ачык ара ен ийи сонужу вердигини көрсөтөт.
Шеклин саг бөлүмү ZnCl2 оптимизасйонуну көрсөтөт. Чинко арттыкча эрүүчү сфGFP-FHL2 миктары йүкселмиш, бирок ОД600 менен өлчүлен бактерия бүйүмеси азайгантыр. Литре башына эрүүчү протеин миктары ачысындан 250 жана 500 µМ деңгээллери ен жогорку маалыматми сагламыштыр.
Шекил 2 не анлатыйор?
Шекил 2А’даки ЖД ийриси жана икинжил түзүлүш таблосуу, сафлаштырылмыш FHL2’нин бекленен генел түзүлүшсал ичериге сахип экенин көрсөтөт. Шекил 2Б’де фарклы FHL2 концентрацияларындаки SEC-SLS ийрилери айны ана елүсйон хажминде топланмакта жана өлчүлен молекулярдык күтле мономерле ылайык калмактадыр.
Бу шекил, үретим ыкмаинин болгону эрүүчү протеин үретмедигини; елде едмененн протеинин катланмыш жана жогорку концентрацияларда белиргин агрегация гөстермейен бир өрнек экенин дестеклемектедир.
Шекил 3 не анлатыйор?
Шекил 3А’даки Краткй графиги FHL2’нин еснеклигини BSA менен салыштырууктадыр. Шекил 3Б созулган AlphaFold модельини жана LIM домендеринын болжол менен бойутларыны көрсөтөт. Шекил 3Ж’де бул тек модельин денейсел SAXS маалыматсине ийи уймадыгы гөрүлмектедир.
Шекил 3Д’деки чифтлер арасы узаклык дагылымы 22,5 Å живарында тепе йапмакта жана 137 Å’йе кадар узанмактадыр. Бул, тек тек LIM домендеринын компакттуу олмасына рагмен бүтүн протеинин созулган жана бүкүлебилир бир дүзен олуштурдугуну көрсөтөт.
Шекил 4 жана Шекил 5 не анлатыйор?
Шекил 4, SAXS жана XL-MS маалыматлерине бирликте уйан беш фарклы конформация топлулугу амененсини көрсөтөт. Хер сатырда SAXS уйуму, каршыланан чапраз баглар жана о топлулукта булунан темсилжи түзүлүшлар бирликте маалыматлмиштир.
Моделлерин хичбиринде болгону тек бир протеин бичими баскын эмес. Айны топлулук үчүнде дүз, кысмен бүкүлгөн жана белиргин шекилде компакттуулашмыш модельлер бир арада булунмактадыр.
Шекил 5, хер топлулук амененсиндеки созулган, ара жана бүкүлгөн абалларын йүздесини топлу катары көрсөтөт. Беш амененнин тамамында бүкүлгөн конформация булунмасы, компакттуу бичимлерин болгону модельлеме сырасында ортайа чыкан истиснаи түзүлүшлар олмадыгыны көрсөтөт.
Шекил 6 не анлатыйор?
Шекил 6А’да FHL2 менен β-катенин бирликте маалыматлдигинде йени бир хроматография пики олушмактадыр. Алтындаки жел, йени пик үчүнде ики протеинин де булундугуну догруламактадыр.
Шекил 6Б’де комплексин 140,2 кДа катары өлчүлен молекулярдык күтлеси, ики FHL2 жана бир β-катенин үчүн хесапланан 149,8 кДа мааниле каршылаштырылмыштыр.
Шекил 6Ж, хер FHL2 енжексийонунда ортайа чыкан ысы акышы пиклерини гөстерен ITC термограмыдыр. Шекил 6Д’де ентегре едмененн ысы маанилери тыныгуур катышла каршылаштырылмыш жана н = 2,040, Кд = 530 нМ сонужу елде едилмиштир.
Изилдөөнын кечмиш, бүгүн жана келечек ачысындан өнеми
Гечмиш ачысындан изилдөө, толук узакдуктагыки FHL2’нин түзүлүшсал анализини сынырлайан үретим сорунуна чөзүм суунмактадыр. Өнжеки изилдөөлар чогунлукла чоң фьюжн етикетлери ташыйан же чок төмөн миктарларда елде едмененн FHL2 өрнеклерийле йүрүтүлмүштүр.
Бугүн ачысындан изилдөө, FHL2’нин чөзелтиде мономердик факат жогорку дережеде еснек бир протеин экенин денейсел катары көрсөтөт. Бөйлеже FHL2’нин болгону аланларын догрусал бичимде сыраландыгы серт бир түзүлүш катары чизилмесинин йетерсиз экени ортайа конулмуштур.
Изилдөө айны заманда толук узакдуктагы жана тегсиз протеинлер кулланылдыгында β-катенин менен 2:1 комплекс олушабилдигини көрсөтөт. Бул жыйынтык, Wnt/β-катенин синйал комплекслеринде дагы мурда диккате алынмамыш чок маанили бир байланыш тартиби булунабмененжегини дүшүндүрмектедир.
Гележек ачысындан FHL2 менен β-катенин арасындаки кесикн темас бөлгелеринин белирленмеси герекмектедир. Бунун үчүн крийо-электрондук микроскопия, NMR, йени XL-MS денейлери, суутек-дейтерий алмашуусу, мутация анализи жана клетка ичи сүрөттөө ыкмалери кулланылабилир.
Айрыжа ики FHL2 молекүлүнүн:
- β-катенинин айны йүзейиндеки ики бөлгейе ми,
- Бирбиринден узак ики бөлгейе ми,
- Бирбирлерийле темас едерек ми,
- Сыралы же еш заманлы бичимде ми багландыгы белирленмелидир.
Бензер түзүлүшсал изилдөөлар FHL2’нин PI3K/AKT/mTOR, MAPK/ERK жана TGF-β гиби дигер синйал йолларындаки комплекслери үчүн де уйгуланабилир.
Гүнделик жашоо жана саглык ачысындан анламы
Бу изилдөө түздөн-түз бир препарат, таны тести же дарылоо гелиштирмемиштир. Гүнлүк жашоо ачысындан хемен уйгуланабмененжек бир жыйынтык суунмамактадыр. Өнеми дагы темел деңгээлдедир: Хүжре үчүнде рак, калп оорулары жана доку йанытларыйла илишкмененндирмененн бир дүзенлейижи протеинин насыл шекил өзгөртирдигини жана өнемли бир синйал протеинийле ханги катышда бирлештигини түшүндүрмөктадыр.
Оорулара йөнелик максатли дарылоолер гелиштирмененбилмеси үчүн болгону бир протеинин миктарыны эмес, ханги молекулярдык ортакла ханги йүзейден жана ханги стехиометрияйле багландыгыны билмек герекир. Бул изилдөө келечекте FHL2-β-катенин еткмененшимини максатлейежек изилдөөлар үчүн герекли түзүлүшсал темелин бир бөлүмүнү сагламактадыр.
Бунунла бирликте 2:1 комплексин бозулмасынын раки йавашлатажагы, FHL2’нин енгелленмесинин гүвенли экени же бул еткмененшимин бейтаптарда дарылоо максати катары кулланылабмененжеги гөстерилмемиштир.
Изилдөөнын күчтүү йөнлери
- Там узаклукта жана сон ашамада тегсиз FHL2 миллиграмм масштабында үретилмиштир.
- Фарклы фьюжн етикетлери денейсел катары каршылаштырылмыштыр.
- Чинко дестегинин эрүүчүлүк жана бактерия бүйүмеси үзериндеки каршыт еткмененри бирликте маанилендирилмиштир.
- Сафлаштырылмыш протеинин бүктөлүүсы ЖД менен контрол едилмиштир.
- Олигомерик абал SEC-SLS менен фарклы концентрацияларда изилденген.
- Еснеклик SEC-SAXS менен түздөн-түз денейсел катары маанилендирилмиштир.
- SAXS маалыматлери XL-MS кысытламаларыйла бүтүнлештирилмиштир.
- Он бинлерже конформация маанилендирмененрек тек түзүлүшлы йорумдан качынылмыштыр.
- FHL2-β-катенин еткмененшими SEC, SDS-PAGE, SEC-SLS жана ITC гиби тамамлайыжы ыкмалерле догруланмыштыр.
- Стехиометрия ики көз карандысыз нижел ыкмале 2:1 катары дестекленмиштир.
- SAXS, протеомик жана модельлеме маалыматлеринин өнемли бөлүмү ачык маалымат деполарына актарылмыштыр.
Изилдөөнын чектелгенлыклары
- Изилдөө хакем маанилендирмесинден кечмемиш бир препринттир.
- Денейлер сафлаштырылмыш рекомбинанттык протеинлерле ин витро ортамда түзүлүшлмыштыр.
- 2:1 стехиометрия жанлы клеткалерде түздөн-түз гөрүнтүленмемиштир.
- FHL2 менен β-катенинин кесикн байланыш йүзейлери хариталанмамыштыр.
- Ики FHL2 молекүлүнүн айны же фарклы байланыш меканизмаларыйла комплексе катылып катылмадыгы билинэмчекктедир.
- SAXS төмөн эрүүчүлүклү генел шекил билгиси маалыматр; атомик түзүлүш сагламаз.
- Бүтүнлештирижи модельлеме тек бир бензерсиз түзүлүш эмес, денейсел маалыматлерле ылайык оласы түзүлүшлар үретмектедир.
- Тек тек топлулуклар XL-MS чапраз багларынын болгону йүзде 57,4–69,6’сыны айны анда каршыламыштыр.
- сфGFP чыкарылыркен болжол менен йүзде 50 протеин кайбы йашанмасы, үретим мөөнөтжинде протеинин бир бөлүмүнүн карарсыз калдыгыны көрсөтөт.
- Протеинлерин бактериялерде үретилмеси, инсан клеткаларындеки пост-трансляциялык өзгөрүүлерин булунмадыгы дегенди билдирет.
- Фосфориласйон же дигер клеткалык өзгөрүүликлерин стехиометрияйи насыл еткменендиги инжеленмемиштир.
- Изилдөө клеткалык Wнт максат генлерини, түмөр бүйүмесини же дарылоо йанытыны өлчмемиштир.
Препринт метнинде базы бичимсел отчетлама сорунлары да булунмактадыр. Чок саныда йерде “Error! Reference source not found.” ифадеси калмыш, ек маалыматйе аит DOI аланы тамамланмамыш жана базы ыкма листелеринде текрар же тутарсыз йазылмыш концентрациялар булунмактадыр. Шекил 1 түшүндүрмөсында маанилүүлык чеклери “* p ≤ 0,5; ** p ≤ 0,1; *** p ≤ 0,001” бичиминде маалыматлмиштир. Илк ики чек билимсел йайынларда сык кулланылан сынырларла ылайык гөрүнмедигинден, бул маанилер препринтин кийинки сүрүмүнде догруланмасы герекен отчетлама айрынтыларыдыр. Бурада изилдөө дүзелтилмемиш, метинде билдирмененн абал айнен диккате алынмыштыр.
Изилдөө не сөйлүйор?
- сфGFP фьюжну жана уйгун цинк дестеги, бактериялерде эрүүчү FHL2 үретимини күчтүү бичимде артырмыштыр.
- Там узаклуктаки тегсиз FHL2 миллиграмм масштабында сафлаштырылабилмиштир.
- Сафлаштырылмыш FHL2’нин икинжил түзүлүшсы бекленен модельле ылайыкдур.
- FHL2 чөзелтиде агырлыклы катары мономердир.
- FHL2 серт жана тамамен созулган бир протеин эмес.
- Протеин созулган, ара жана компакттуу бичимде бүкүлгөн конформациялар арасында дагылым көрсөтөт.
- FHL2 менен β-катенин түздөн-түз жана микротыныгуурын алтында бир афинитейле байланышктадыр.
- Там узаклуктаки тегсиз протеинлерле комплексин баскын стехиометрияси 2 FHL2:1 β-катениндир.
- Багланма елмаалыматшли молекулалар аралык контактларла йөнлендирилмекте, бирок конформация өзгүрлүгү кайбы олуштурмактадыр.
Изилдөө не сөйлемийор?
- 2:1 комплексин бүтүн клетка типлеринде зорунлу катары олуштугуну гөстерэмчекктедир.
- Ики FHL2’нин β-катенин үзериндеки кесикн байланыш конумларыны белирлеэмчекктедир.
- Комплексин атомик эрүүчүлүклү түзүлүшсыны суунмамактадыр.
- FHL2’нин бүтүн раклерде онкоген же бүтүн раклерде шишик басаңдатуучу экенин гөстерэмчекктедир.
- FHL2-β-катенин еткмененшиминин енгелленмесинин дарылоо саглайажагыны гөстерэмчекктедир.
- Херханги бир препарат адайыны, гүвенлик профилини же клиникалык сонужу маанилендирэмчекктедир.
- Бейтапларда танысал же прогностик догрулама суунмамактадыр.
Изилдөөнын Ыкмаи жана Жыйынтыктары
Денейсел изилдөө акышы
| Ашама | Уйгуланан ыкма | Амач | Темел жыйынтык |
|---|---|---|---|
| Йапы тасарымы | HT-, GST-, MBP- жана сфGFP-FHL2 фьюжнлары | Ен уйгун эрүүчүлүк етикетини сечмек | сфGFP ен жогорку эрүүчү протеин үретимини саглады. |
| Чинко оптимизасйону | 0–1.000 µМ ZnCl2 | LIM домендеринын бүктөлүүсыны дестеклемек | 250–500 µМ ен уйгун жалпы маалыматми саглады. |
| Бүйүк өлчекли үретим | Е. жоли BL21(DE3), 18°Ж геже индүксийону | Йапысал анализлере йетерли протеин үретмек | Йаклашык 5,9 мг/Л тегсиз FHL2 елде едилди. |
| Сафлаштырма | Ики IMAC, TEV кесикми, диализ жана SEC | сфGFP етикетини чыкарарак толук узакдуктагы FHL2 елде етмек | Йаклашык %90 сафлык жана 19 мг/мЛ йогунлук елде едилди. |
| Икинжил түзүлүш | Даиресел дикроизм | Протеинин догру бүктөлүүсыны маанилендирмек | Денейсел хеликс жана бета катмар катышлары модельле ылайык булунду. |
| Олигомерик абал | SEC-SLS | FHL2’нин мономер же димер экенин белирлемек | Ана түрүн мономер экени белирленди. |
| Генел түзүлүш | SEC-SAXS | Чөзелтидеки бойут жана еснеклиги өлчмек | FHL2’нин созулган факат белиргин бичимде еснек экени гөрүлдү. |
| Месафе кысытламалары | BS3 чапраз баглама жана XL-MS | Аланлар арасындаки йакынлыклары белирлемек | Моделлеме үчүн 46 аланлар арасы лизин чапраз багы кулланылды. |
| Бүтүнлештирижи модельлеме | RRT, BioEmu, FoXS, MultiFoXS жана XLP пуанлама | Еснек конформация топлулукларыны белирлемек | Беш ана түзүлүшсал топлулук амененси танымланды. |
| Комплекс олушуму | SEC жана SDS-PAGE | FHL2 менен β-катенинин түздөн-түз комплексини гөстермек | Ики протеини камтыган йени жана дагы чоң бир пик олушту. |
| Комплекс күтлеси | SEC-SLS | Багланма стехиометриясини белирлемек | 140,2 кДа комплекс 2:1 стехиометрияйи дестекледи. |
| Багланма термодинамиги | ITC | Багланма гүжү, катышы жана енержи бмененшенлерини өлчмек | н = 2,040; Кд = 530 нМ катары булунду. |
Протеин үретим кошуллары
- Конак клетка: Е. жоли BL21(DE3).
- Бүйүтме ортамы: ЛБ.
- FHL2 индүксийону: 0,25 мМ IPTG.
- β-катенин индүксийону: 1 мМ IPTG.
- Бүйүк өлчекли FHL2 үретиминде ZnCl2: 250 µМ.
- Индүксийон кийинсы сыжаклык: 18°Ж.
- Индүксийон мөөнөтси: Геже бойунжа.
- FHL2 жана сфGFP арасындаки TEV кесикм дизиси: ENLYFQ↓Г.
SAXS өлчүм кошуллары
- FHL2 өрнек концентрацияу: 7,5 мг/мЛ.
- Енжексийон хажми: 100 µЛ.
- Колон: Супердеx 200 Ынжреасе 10/300 ГЛ.
- Акыш хызы: 0,7 мЛ/дакика.
- Ышын хатты: PETRA III, P12, DESY Хамбург.
- X-ышыны енержиси: 9 кеВ.
- Анализ пакети: ATSAS 4.1.0.
- Дүшүк ачылы, 0,01 Å−1 алтындаки маалыматлер денейсел артефакт риски себепийле чыкарылмыштыр.
XL-MS жана модельлеме айрынтылары
- FHL2 концентрацияу: 23,36 µМ.
- BS3 чапраз баглайыжы концентрацияу: 697 µМ.
- Чапраз баглама: 25°Ж’де 10 дакика.
- Реаксийон дурдурма: 100 мМ Tris-HCl, пХ 8,0.
- Протеин синдирими: Трипсин.
- Күтле спектрометреси: Орбитрап Фусион Лумос.
- Моделлемеде кулланылан аланлар арасы лизин чапраз баглары: 46.
- Ен ийи топлулук сечим ешиги: Бүтүнлештирилмиш пуан ≥ 0,887.
- Сечмененн топлулук саны: 104.
- Йапысал саделештирмеден кийинки фарклы топлулук саны: 28.
- Нихаи топлулук амененси саны: 5.
Темел нижел жыйынтыклар
| Өлчүм | Жыйынтык |
|---|---|
| сфGFP менен жалпы ифаде өсүшы | 7,0 ± 0,7 кат |
| сфGFP менен эрүүчү фракция өсүшы | 6,2 ± 1,6 кат |
| Топлам эрүүчү протеин өсүшы | 45,3 ± 8,5 кат |
| Сафлаштырма маалыматми | Йаклашык 5,9 мг/Л культура |
| Сафлык | Йаклашык %90 |
| Улашылан FHL2 концентрацияу | 19 мг/мЛ |
| Денейсел алфа хеликс катышы | %14,2 |
| Денейсел антипаралел бета катмар катышы | %23,1 |
| Денейсел Рг | 37,8 Å |
| Денейсел Дмаx | 137 Å |
| Узатылмыш модель Рг | 50,7 Å |
| Узатылмыш модель Дмаx | 177 Å |
| Чифтлер арасы узаклык тепе ноктасы | 22,5 Å |
| Тек созулган модель SAXS χ2 | 15,231 |
| Топлулук модельлери SAXS χ2 | 2,302–2,512 |
| Топлулук башына каршыланан XL-MS багы | %57,4–69,6 |
| Топлам ачыкланан чапраз баг | 43/46 |
| Узатылмыш конформация катышы | %35–57 |
| Бүкүлмүш конформация катышы | %11–34 |
| Ара конформация катышы | %12–54 |
| Комплексин өлчүлен күтлеси | 140,2 кДа |
| 2 FHL2 + 1 β-катенин теорик күтлеси | 149,8 кДа |
| ITC стехиометрияси | 2,040 ± 0,001 |
| Айрышма сабити Кд | 530 ± 30 нМ |
| ΔХ | −31,4 ± 0,2 кжал/мол |
| −ТΔС | 22,8 кжал/мол |
| ΔГ | −8,57 кжал/мол |
Вермененрин топлу текник йоруму
- FHL2 үретиминдеки темел сынырлама, протеинин цинк багымлы бүктөлүүсы жана агрегацияа егилимидир.
- сфGFP үретим сырасында эрүүчүлүгү артыран ен еткили фьюжн ортагы болгон.
- Чинко дестеги догру бүктөлүүйы колайлаштырмыш, бирок жогорку концентрацияда бактерияйел бүйүмейи баскыламыштыр.
- Сафлаштырылмыш FHL2’нин мономердик, катланмыш жана консантре едмененбилир экени көрсөтүлгөн.
- SAXS жыйынтыклары тек бир созулган түзүлүшнын денейсел маалыматйи ачыклайамадыгыны гөстермиштир.
- XL-MS дестекли модельлеме, FHL2’нин бирден көп түзүлүшсал абал арасында харекет еттигини гөстермиштир.
- FHL2’нин догал олигомерлешме егилими гөрүлэмчексине рагмен β-катенин комплексинде ики FHL2 булунабилмектедир.
- Багланма катышы протеин концентрацияу жана карышым катышындан еткмененнмектедир.
- 2:1 стехиометрия хем молекулярдык күтле өлчүмү хем де калориметрийле дестекленмиштир.
- Комплексин кесикн молекулярдык геометриси азырынча белирленмемиштир.
Булак жана Ыкма Ноту
Бу ичерик, Тина Логондер, Уроš Преšерн жана Алжаž Габер тарафындан хазырланан “FHL2 production enabled new insight into its flexibility and unexpected binding stoichiometry with β-catenin” баш кийимлы изилдөөйа дайанмактадыр.
Изилдөө, Лжублжана Үниверситеси Кимйа жана Кимйа Текноложиси Факүлтесинде герчеклештирмененн денейсел бир препринт изилдөө макаласидир. Метинде ачыкча “This preprint research paper has not been peer reviewed” уйарысы булунмактадыр. Ошондуктан изилдөө хакем маанилендирмесинден кечмемиштир. PDF’де макалганин бир дерги тарафындан кабул едилдигине же хакемли сүрүмүнүн йайымландыгына илишкин билги маалыматлэмчекктедир.
Изилдөө клиникалык изилдөө эмес. Бейтап грубу, дарылоо колу, түмөр йаныты же клиникалык гүвенлик маанилендирмеси булунмамактадыр. Изилдөө; бактериялерде үретмененн рекомбинант FHL2 жана β-катенин протеинлери үзеринде түзүлүшлан ин витро протеин үретими, сафлаштырма, бийофизиксел өлчүм, масс-спектрометрия жана хесапламалы бүтүнлештирижи модельлемейе дайанмактадыр.
SAXS маалыматлеринин Смалл Англе Сжаттеринг Биологижал Дата Банк’а SASDZ36 еришим кодуйла актарылдыгы белгиленген. Күтле спектрометриси маалыматлери PRIDE/ProteomeXchange системине PXD078621 маалымат күмеси катары йүкленмиштир. Бүтүнлештирижи модельлеме маалыматлери менен базы шекил маалыматлери Зенодо үзеринде 10.5281/зенодо.19680353 DOI’сийле пайлашылмыштыр. Бул DOI изилдөө маалыматлерине аиттир; макалганин хакемли йайымланмыш сүрүмүнү ифаде етэмчекктедир.
Изилдөө Словенйа Изилдөө жана Иновасйон Ажансы тарафындан PS-0140 нумаралы дестекле финансе едилмиштир. Йазарлар билинен бир мали чыкар чатышмасы же кишисел чыкар илишкиси булунмадыгыны билдирмиштир.
Метинде, анализ кодунун йазылмасына йардымжы олмак амажыйла ChatGPT кулланылдыгы; изилдөөжыларын олуштурулан ичериги көзден кечирип дүзенледиги жана макалганин сорумлулугуну үстлендиги ачыкланмыштыр.
Бу Түркче макала болгону йүкленен изилдөөда суунулан ыкмалере, санысал маалыматлере, шекиллере, жыйынтыклара жана йазарларын төсүшмасына дайанарак хазырланмыштыр. PDF’де булунмайан клиникалык етки, таны башарысы, препарат еткинлиги, дарылоо гарантиси, тижари уйгуланабилирлик же бейтап жарары иддиалары екленмемиштир.
Изилдөөнын темел билимсел каткысы, толук узакдуктагыки тегсиз FHL2’нин йетерли миктарда үретмененбилдигини, чөзелтиде еснек бир конформация топлулугу олуштурдугуну жана толук узакдуктагыки β-катенинле 2:1 катышында комплекс курабилдигини гөстермесидир. Багланма йүзейлеринин, клетка ичи стехиометриянин жана биологиялык жыйынтыкларын белирленмеси үчүн йени денейлер герекмектедир.
Пикир калтырыңыз
E-mail дарегиңиз жарыяланбайт. Милдеттүү талаалар * менен белгиленген