

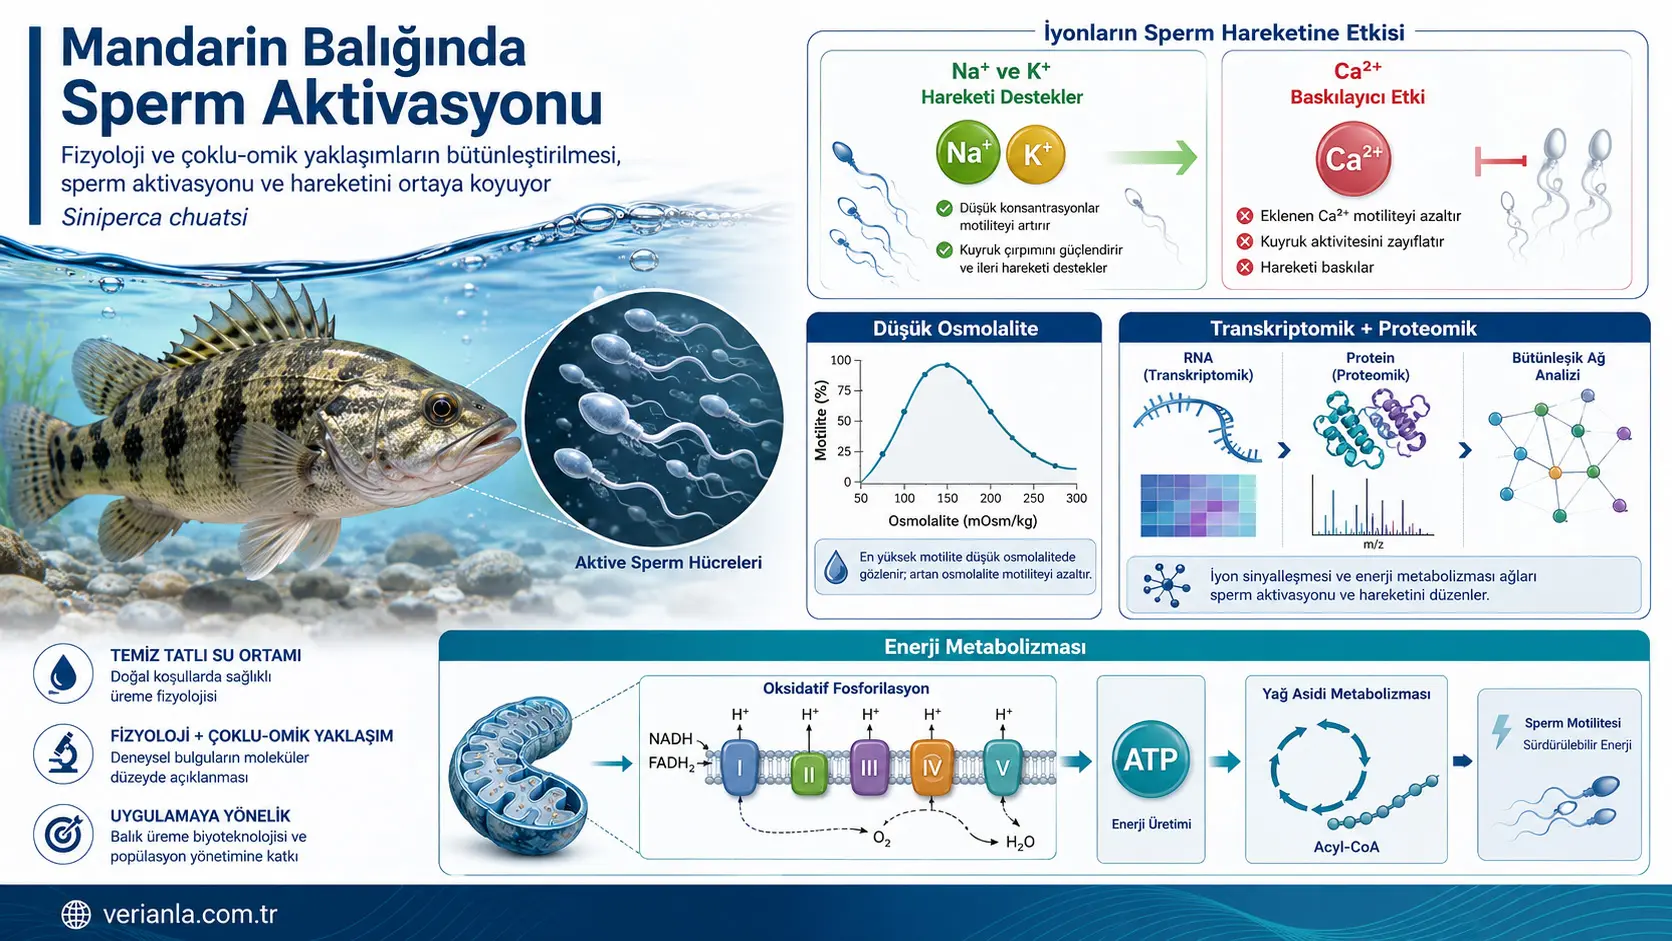
Таттуу суу балыктарында сперма клеткалары эркек көбөйүү системасы iчinde кыймылсыз абалда tutulur жана suyla karшыlaшtыklarыnda өтө кыска созулган, жогорку энергия талап кылган бир кыймыл мезгилине girer. Бул кыска убакыт аралыгында sperm hүcresinin жумурткага жетиши; чөйрөнүн осмолялдуулугуна, натрий, калий жана кальций сыяктуу iyonlarыn miktarыna, клетка мембранасындагы ион каналдарына жана колдонулуучу ATP корлоруна baгlыdыr.
Qinghua Wang жана кесиптештери, экономикалык жактан маанилүү бир таттуу суу түрү olan mandarin balыгыnda Siniperca chuatsi сперманын активдешүүсүнүн физиологиялык жана молекулярдык негизин araшtыrmышtыr. Изилдөөda өnce 24 erkek balыktan alыnan sperm өrnekleri ар кандай осмолялдуулук, NaCl, KCl, CaCl2, ион аралашмасы жана pH шарттарында активдештирилген. Ardыndan жаңы сперма менен tatlы suda 60 saniye sүreyle активдештирилген сперма өrnekleri транскриптомдук жана протеомдук ыкмалар менен салыштырылган.
Чыпкаланган таттуу сууда sperm кыймылдуулугу активдешүүдөн 10 секунддан кийин %89,10 ± 2,83 iken, 20. saniyede %55,62 ± 5,27’ye жана 30. saniyede %6,54 ± 3,25’e төмөндөгөн. Бул тез жоготуу, mandarin balыгы sperminin hareket үчүн kullanabileceгi энергия корунун жана натыйжалуу уруктануу убактысынын чектелүү экенин көрсөтөт.
Физиологиялык эксперименттерде 0–150 mOsm/kg аралыгында, өzellikle aktivasyonun ilk 10 saniyesinde %70’in үzerinde кыймылдуулук байкалган. Bununla birlikte osmolalite yүkseldikчe baшlangыч кыймылдуулугу azalmыш жана изилдөөчүлөр ар түрдүү эксперименттер arasыnda tutarlы жогорку performans saгladыгы үчүн 50 mOsm/kg deгerini кийинки ион жана pH karшыlaшtыrmalarыnda ылайыктуу активдешүү осмолялдуулугу катары тандаган.
Төмөн концентрациялуу NaCl жана KCl эритмелери sperm aktivasyonunu колдогон. Yazarlar жалпы ион концентрациясы 25 mM’yi ашпаган Na⁺ жана K⁺ чөйрөлөрүнүн жогорку кыймылдуулук камсыздай аларын билдирген. NaCl жана KCl’nin ар кандай катыштары toplam кыймылдуулукte чоң өзгөрүү жараткан эмес, бирок 7:1, 1:5 жана 1:7 NaCl:KCl oranlarы тез кыймылдаган сперма класстарынын үлүшүн көбөйткөн.
CaCl2 ise sperm кыймылдуулугуni күчтүү түрдө баскан. CaCl2:NaCl veya CaCl2:KCl oranы 1:500’үn altыna indirildiгinde, yaklaшыk 0,06 mM’den төмөн Ca²⁺ dүzeylerinin кыймылдуулук үzerindeki таасири статистикалык жактан маанилүү olmamышtыr. Бул табылга, жасалма уруктандыруу sыrasыnda aktivasyon эритмесинин жогорку miktarda Ca²⁺ камтыбашы маанилүү болушу мүмкүн экенин көрсөтөт.
pH эксперименттеринде, 50 mOsm/kg NaCl чөzeltisi iчinde эң жогорку кыймылдуулук pH 8’de байкалган. Ancak бул жыйынтык гана белгилүү бир NaCl жана osmolalite koшulunda, активдешүүдөн 10 секунддан кийинki өлчөөгө негизделет; ар түрдүү su bileшimleri veya gerчek dөllenme ortamlarы үчүн түз жалпыланбашы керек.
RNA секвенирлөө analizinde aktive жана жаңы сперма arasыnda 855 ар түрдүү экспрессияланган ген аныкталган. Bunlarыn 625’i арткан, 230’u азайган. Proteomik analizde 4.037 протеин аныкталган жана 752 proteinin молчулугунда маанилүү өзгөрүү saptanmышtыr; 297 протеин artarken 455 протеин азайган.
Иki маалымат катмарынын бирге баалоо аркылуу Na⁺, K⁺ жана Ca²⁺ сигналдашуусу менен энергия метаболизмине baгlanan алты ген жана 35 протеин алдыга чыгарылган. grin3bb, cacna1c жана chrna7 сыяктуу ион каналы менен байланышкан гендердин арткандыгы; ATP1B, ATP2A, ATP2B, CACNA1H жана PRKCB сыяктуу ион taшыnmasы жана клетка ичиндеги кальций dengesine katыlan протеиндердин жогорулаганы билдирилген.
Enerji metabolizmasы sonuчlarы, sperm aktivasyonundan sonra гликолиз менен байланышкан ген жана proteinlerin azaldыгыnы; май кислотасынын бузулушу менен митохондриялык оксидативдүү фосфорлануу компоненттеринин arttыгыnы gөstermiшtir. Araшtыrmacыlar бул deseni, hareket hâlindeki sperm hүcresinin энергия үretiminde glikolizden липид asidi kullanыmы жана mitokondriyal ATP өндүрүшүne doгru бир kayma yaшamasы катары түшүндүргөн.
Bununla birlikte molekүler жыйынтыктар henүz түз механизм далили эмес. Hүcre iчi Na⁺, K⁺ veya Ca²⁺ агымы өлчөнгөн эмес; ATP өндүрүшү, митохондриялык дем алуу, мембрана потенциалы ya da ион kanalы etkinliгi түз текшерилген эмес. Ayrыca изилдөө чыныгы уруктануу пайызын, эмбриондун өнүгүшүн veya чабак чыгуу ийгилигин баалаган эмес. Бул nedenle өnerilen aktivasyon чөzeltisi koшullarы, жасалма уруктандыруу uygulamalarыna yөnelik deneysel бир негизги sunmakta; tamamlanmыш saha protokolү veya baшarы garantisi oluшturmamaktadыr.
Кеңири түшүндүрмө
Tatlы su balыгы spermi neden гана kыsa sүre hareket edebiliyor?
Balыk сперма клеткалары, эркек көбөйүү системасы iчinde sүrekli hareket hâlinde эмес. Seminal plazmanыn iyonik жана ozmotik bileшimi spermi geчici катары hareketsiz tutar. Sperm чevredeki suya bыrakыldыгыnda hүcrenin dыш ortamы бир anda deгiшir. Tatlы su tүrlerinde бул deгiшim чoгunlukla dыш ortam osmolalitesinin seminal plazmaya боюнча belirgin biчimde dүшmesiyle baшlar.
Osmolalite, бир kilogram чөzүcү iчinde bulunan жана ozmotik basыnca katkы saгlayan toplam чөzүnmүш parчacыk miktarыnы ifade eder. Yalnыzca белгилүү бир tuzun концентрациясыni deгil, ortamda bulunan bүtүn ион жана molekүllerin toplam ozmotik etkisini temsil eder.
Mandarin balыгы seminal plazmasыnыn osmolalitesi 367–380 mOsm/kg катары өлчөнгөн. Buna karшыlыk сперма клеткалары 0–150 mOsm/kg сыяктуу абдан дагы төмөн osmolalitelerde gүчlү biчimde aktive olmuшtur. Бул bүyүk dүшүш клетка zarыnda ион hareketlerini, мембрана потенциалыni, клетка ичиндеги pH’yы жана kamчы hareketini baшlatan sinyal sүreчlerini tetikleyebilir.
Aktivasyon baшladыktan sonra sperm kamчыsыndaki motor proteinler жогорку miktarda ATP tүketir. Tatlы su balыklarыnыn сперма клеткалары, deniz balыklarыnыn spermine kыyasla чoгunlukla дагы sыnыrlы энергия rezervine sahiptir. Бул nedenle hareket hыzlы baшlar бирок kыsa sүrede azalыr.
Изилдөөnыn filtrelenmiш tatlы su kontrolүndeki zaman serisi бул sыnыrlыlыгы aчыkчa көрсөтөт:
- Aktivasyondan 10 секунддан кийин кыймылдуулук: %89,10 ± 2,83
- Aktivasyondan 20 секунддан кийин кыймылдуулук: %55,62 ± 5,27
- Aktivasyondan 30 секунддан кийин кыймылдуулук: %6,54 ± 3,25
Бул deгerler, hareketin гана yarыm dakika iчinde абдан bүyүk өlчүde kaybolduгunu көрсөтөт. Yapay dөllenme aчыsыndan бул durum, spermin yumurtalarla doгru zamanda жана doгru чөzelti iчinde buluшturulmasыnыn kritik olabileceгi anlamыna gelir.
Mandarin balыгы neden araшtыrыldы?
Siniperca chuatsi, Doгu Asya tatlы su sistemlerinde yaшayan, ekonomik deгeri жогорку yыrtыcы бир balыktыr. Изилдөөda tүrүn Чin, Kore жана Vietnam dâhil olmak үzere Doгu Asya’da daгыldыгы; et kalitesi, besin deгeri жана kaslar arasы kemiklerin bulunmamasы сыяктуу өzellikleri nedeniyle yetiшtiricilikte өnem kazandыгы belirtilmektedir.
Изилдөөda aktarыlan Чin balыkчыlыk istatistiklerine боюнча tүrүn yetiшtiricilik өндүрүшү 2023 yыlыnda 470.000 tonu aшmышtыr. Yapay өндүрүш teknikleri 1980’lerin sonlarыndan itibaren geliшmiш olsa da sperm aktivasyonunu yөneten osmolalite, iyonlar жана molekүler энергия aгlarы yeterince aчыklanmamышtыr.
Araшtыrmanыn amacы гана hangi чөzeltinin эң жогорку кыймылдуулугу verdiгini bulmak эмес. Изилдөө үч dүzeyi birleшtirmektedir:
- Spermin ар түрдүү su жана ион koшullarыndaki gerчek hareketinin өlчүlmesi,
- Aktivasyon sonrasыnda spermde bulunan RNA bolluklarыnыn karшыlaшtыrыlmasы,
- Aktivasyon sonrasыnda протеин bolluklarыnыn жана biyolojik yollarыn deгerlendirilmesi.
Бул bүtүnleшtirici yaklaшыm sayesinde dыш ortam koшullarы менен клетка ичиндегиndeki ион сигналдашуусу жана энергия metabolizmasы arasыnda olasы бир baгlantы kurulmaya чalышыlmышtыr.
Balыklar жана sperm өrnekleri nasыl hazыrlandы?
Deneyler, mandarin balыгыnыn үreme mevsimi olan Nisan-Haziran 2026 dөneminde gerчekleшtirilmiшtir. Kullanыlan erkek balыklarыn:
- Vүcut uzunluгu 25 cm’den fazla,
- Vүcut aгыrlыгы 500 gramdan fazla,
- Yaшы бир yыldan bүyүk катары билдирилген.
Balыklar 5 × 5 × 2 metre boyutlarыnda, havalandыrmalы жана sүrekli tatlы su akышы bulunan beton tankta tutulmuшtur. Su sыcaklыгы 23–28°C, чөzүnmүш oksijen dүzeyi 6 mg/L’nin үzerinde жана ышыk dүzeni 13 saat aydыnlыk менен 11 saat karanlыk катары verilmiшtir.
Balыklar беш dakika өjenol anestezisine alыndыktan sonra sperm karыn bөlgesine yapыlan hafif masajla toplanmышtыr. Kan, idrar veya dышkыyla kirlenmiш өrnekler kullanыlmamышtыr. Yalnыzca ilk кыймылдуулук deгeri %85’in үzerinde olan sperm өrnekleri fizyolojik жана omik analizlere alыnmышtыr.
Deneysel iшlemlerin Sun Yat-sen Үniversitesi Yaшam Bilimleri Fakүltesi Kurumsal Hayvan Bakыm жана Kullanыm Komitesi tarafыndan onaylandыгы белгиленген. PDF’de etik kurul onay numarasы verilmemiшtir.
Sperm кыймылдуулугу nasыl өlчүldү?
Fizyolojik analizlerde 24 erkek balыktan alыnan sperm колдонулган. Her өlчүm үчүн 0,5 µL sperm, 50 µL aktivasyon чөzeltisiyle karышtыrыlmышtыr. Bөylece sperm менен aktivasyon sыvыsы arasыnda hacimsel катары yaklaшыk 1:100 oranы oluшturulmuшtur.
Karышыm hemen optik mikroskop жана renkli CCD kamera altыnda incelenmiш, кыймылдуулук ISAS v2.0 bilgisayar destekli semen analiz sistemiyle hesaplanmышtыr. Өlчүmler:
- 10. saniyede: erken aktivasyon,
- 20. saniyede: hareketin korunmasы,
- 30. saniyede: hareketin gerilemesi катары бааланган.
ISAS sistemi сперма клеткаларыni A, B, C жана D сыяктуу hareket sыnыflarыna da ayыrmышtыr. Ancak бул sыnыflarыn hыz veya yөrүnge eшikleri PDF’de aчыklanmamышtыr. Бул nedenle A, B, C жана D sыnыflarы изилдөөnыn kendi analiz sistemi iчindeki gөreli кыймылдуулук kategorileri катары okunmalыdыr.
Osmolalite deneyi neyi ayыrmayы amaчladы?
Osmolalite таасири эки ар түрдүү чөzeltiyle изилденген:
- Sakkaroz чөzeltisi: Иyon eklemeden гана ozmotik etkinin deгerlendirilmesi үчүн колдонулган.
- Yapay deniz tuzu: Na⁺, Mg²⁺, Ca²⁺, K⁺ жана Sr²⁺ сыяктуу birden fazla ион iчeren karшыlaшtыrma ortamыdыr.
Her эки чөzelti 0 менен 300 mOsm/kg arasыnda, 50 mOsm/kg aralыklarla hazыrlanmышtыr. Bөylece ошол эле osmolalitede ион iчermeyen бир ortam менен чoklu ион iчeren бир ortam салыштырылган.
Aktivasyondan 10 секунддан кийин hem sakkaroz hem de yapay deniz tuzu эритмелериnde 0–150 mOsm/kg аралыгында кыймылдуулук %70’in үzerinde kalmышtыr. Өzellikle 0–50 mOsm/kg аралыгында baшlangыч кыймылдуулугу жогоркуtir.
Osmolalite 100 mOsm/kg’ыn үzerine чыktыkчa кыймылдуулук kademeli катары азайган. 250–300 mOsm/kg dүzeylerinde baшlangыч кыймылдуулугу bүyүk өlчүde baskыlanmышtыr. Бул deгerler seminal plazmanыn 367–380 mOsm/kg osmolalitesine yaklaшtыkчa spermin hareketsiz durumunu дагы fazla koruduгunu dүшүndүrmektedir.
20. saniyede yapay deniz tuzunda 0–50 mOsm/kg, sakkarozda ise өzellikle 50 mOsm/kg gөrece жогорку кыймылдуулугу колдогон. 30. saniyede bүtүn koшullarda кыймылдуулук bүyүk өlчүde azalmыш, бирок 150–200 mOsm/kg civarыnda diгer жогорку osmolalite koшullarыna kыyasla gөrece дагы fazla hareket korunmuшtur.
Burada маанилүү бир denge ortaya чыkmaktadыr:
- Чok төмөн osmolalite spermi hыzlы жана gүчlү biчimde aktive etmektedir.
- Daha жогорку osmolalite baшlangыч кыймылдуулугуni azaltmaktadыr.
- Buna karшыlыk bazы orta-жогорку osmolaliteler hareketin абдан kыsa sүre үчүн biraz дагы uzun korunmasыna yardыmcы olabilmektedir.
Бул durum, sperm hүcresinin enerjisini ilk saniyelerde жогорку hыzla kullanmasы менен hareketi дагы төмөн dүzeyde sүrdүrmesi arasыndaki deгiш tokuшu dүшүndүrmektedir. Ancak изилдөө клетка ичиндеги ATP miktarыnы түз өlчmemiшtir.
Neden 50 mOsm/kg seчildi?
0–150 mOsm/kg аралыгында жогорку кыймылдуулук gөrүlmesine raгmen 50 mOsm/kg; yapay deniz tuzu, sakkaroz, NaCl жана KCl deneylerinin tamamыnda erken aktivasyon aчыsыndan tutarlы жыйынтык verdiгi үчүн birleшik ион жана pH эксперименттеринде изилдөө osmolalitesi катары seчilmiшtir.
Бул nedenle 50 mOsm/kg deгeri, biyolojik катары tek geчerli eшik anlamыna gelmez. Araшtыrmacыlarыn кийинки deneyleri standartlaшtыrmak үчүн kullandыгы, жогорку baшlangыч кыймылдуулугу saгlayan pratik бир эксперимент koшuludur.
Na⁺ жана K⁺ sperm hareketini nasыl etkiledi?
NaCl жана KCl эритмелери 0–300 mOsm/kg arasыnda ayrы ayrы test edilmiшtir. Aktivasyondan 10 секунддан кийин her эки tuzda da 0–50 mOsm/kg аралыгында жогорку кыймылдуулук korunmuшtur.
20. saniyede:
- NaCl, 0–100 mOsm/kg аралыгында жогорку кыймылдуулугу колдогон.
- KCl, 0–50 mOsm/kg менен 150 mOsm/kg koшullarыnda gөrece жогорку кыймылдуулук saгlamышtыr.
30. saniyede NaCl жана KCl ortamlarыnda кыймылдуулук %40’ыn altыna төмөндөгөн. Bununla birlikte 150–200 mOsm/kg civarыnda diгer жогорку osmolalite koшullarыndan дагы fazla hareket korunmuшtur.
Aynы osmolalite dүzeyinde эки ион arasыnda zaman жана deriшime baгlы kүчүk farklыlыklar gөrүlmүшtүr:
- 250 mOsm/kg жана 10. saniyede NaCl, KCl’den дагы жогорку кыймылдуулук saгlamышtыr.
- 200 mOsm/kg жана 20. saniyede KCl, NaCl’den дагы жогорку кыймылдуулук gөstermiшtir.
- 250 mOsm/kg жана 30. saniyede de KCl lehine бир fark билдирилген.
- 50 mOsm/kg жана 10. saniyede NaCl, en тез кыймылдаган A sыnыfы sperm oranыnы KCl’ye боюнча artыrmышtыr.
Sonuчlar, Na⁺ veya K⁺ iyonlarыnыn tek baшыna mutlak бир “aчma dүгmesi” сыяктуу изилдөөdыгыnы; etkilerinin osmolaliteye, zamana жана sperm hareket sыnыfыna baгlы olduгunu көрсөтөт.
Төмөн ион концентрациясы neden yararlы болушу мүмкүн?
Tatlы su balыгы spermi, seminal plazmadan төмөн osmolaliteli suya geчtiгinde клетка ичиндеги жана dышы ион dengesi aniden deгiшir. Изилдөөnыn tөсүшmasыna боюнча төмөн dыш K⁺ dүzeyi hүcreden K⁺ чыkышыnы жана zarыn hiperpolarizasyonunu destekleyebilir. Бул elektriksel deгiшim, сперманын активдешүүсүнүн ilk sinyallerinden biri болушу мүмкүн.
Na⁺ ise sperm hүcresindeki Na⁺/H⁺ deгiшtiricileri жана baшka ион taшыma sistemleri үzerinden клетка ичиндеги pH’nыn dүzenlenmesine katkыda bulunabilir. Hүcre iчinin дагы alkali hâle gelmesi, kamчыdaki dinein motorlarыnыn ATPaz etkinliгini жана kamчы vuruшlarыnы destekleyebilir.
K⁺ giriшinin жана Na⁺/K⁺-ATPaz etkinliгinin de hareket baшladыktan sonra мембрана потенциалыni жана клетка ичиндеги K⁺ dengesini korumaya yardыmcы olabileceгi dүшүnүlmektedir.
Ancak бул изилдөөda клетка ичиндеги Na⁺ veya K⁺ miktarы, Na⁺/H⁺ deгiшtirici etkinliгi, мембрана потенциалы ya da dinein ATPaz aktivitesi түз өlчүlmemiшtir. Бул aчыklamalar fizyolojik sonuчlarla жана omik verilerle uyumlu mekanistik yorumlardыr.
NaCl жана KCl karышыmlarы nasыl жыйынтык verdi?
50 mOsm/kg sabit osmolalitede NaCl:KCl molar oranlarы 7:1, 5:1, 3:1, 1:1, 1:3, 1:5 жана 1:7 катары салыштырылган. Aktivasyondan 10 секунддан кийин toplam кыймылдуулук aчыsыndan oranlar arasыnda статистикалык жактан маанилүү fark bulunmamышtыr.
Bununla birlikte hareket sыnыflarы incelendiгinde 7:1, 1:5 жана 1:7 oranlarы A sыnыfыndaki hыzlы sperm үлүшүн көбөйткөн. Бул жыйынтык, ар түрдүү Na⁺ жана K⁺ oranlarыnыn toplam hareket eden sperm yүzdesini deгiшtirmeden hareket kalitesinin daгыlыmыnы etkileyebileceгini dүшүndүrmektedir.
Oranlarыn simetrik olmayan жыйынтык vermesi, tek жана basit бир optimum Na⁺:K⁺ oranы bulunmadыгыnы da көрсөтөт. Изилдөө бул oranlarы gerчek yumurta dөllenme denemelerinde sыnamamышtыr.
Ca²⁺ neden ар түрдүү davrandы?
Birчok жаныбар tүrүnde kontrollү клетка ичиндеги Ca²⁺ sinyali sperm hareketi үчүн керек. Buna karшыlыk dыш ortamdaki fazla Ca²⁺ her zaman yararlы эмес. Mandarin balыгы deneylerinde CaCl2 iчeren aktivasyon эритмелери hem 10. hem de 20. saniyede кыймылдуулугу belirgin biчimde azaltmышtыr.
CaCl2 эритмесинин osmolalitesi yүkseldikчe кыймылдуулук дагы da dүшmүш; 200–300 mOsm/kg аралыгында өzellikle 20. saniyede hareket neredeyse tamamen ortadan kalkmышtыr.
Бул жыйынтык ilk bakышta, omik analizlerde bazы Ca²⁺ giriш kanallarы жана кальций sinyal proteinlerinin artmasыyla чeliшkili gөrүnebilir. Ancak dыш ortamda жогорку Ca²⁺ bulunmasы менен клетка ичиндегиndeki kыsa sүreli жана kontrollү Ca²⁺ sinyali ошол эле шey эмес.
Изилдөөnыn өnerdiгi modelde:
- Belirli kanallar үzerinden sыnыrlы Ca²⁺ giriшi sinyal iletimini жана kamчы dүzenlenmesini destekleyebilir.
- ATP2A жана ATP2B сыяктуу pompalar sitoplazmadaki fazla Ca²⁺’yы клетка ичиндеги depolara veya клетка dышыna taшыyarak dengeyi koruyabilir.
- Dыш ortamdan aшыrы Ca²⁺ giriшi бул dengeyi bozabilir.
- Жогорку Ca²⁺, kamчы mikrotүbүllerinin kayma hareketini baskыlayabilir veya mitokondriyle iliшkili hүcresel hasar yollarыnы etkinleшtirebilir.
Бул модель, “Ca²⁺ tamamen gereksizdir” sonucunu desteklemez. Daha doгru жыйынтык, mandarin balыгы sperminde dыш aktivasyon ortamыna fazla Ca²⁺ eklenmesinin кыймылдуулугу baskыladыгы; клетка ичиндегиndeki Ca²⁺ sinyalinin ise sыkы biчimde dүzenlenmesi gerektiгidir.
Ca²⁺ үчүн 1:500 oranы ne anlama geliyor?
CaCl2, NaCl veya KCl менен ар түрдүү molar oranlarda karышtыrыlmышtыr. Kullanыlan CaCl2:NaCl/KCl oranlarы 1:10 менен 1:1000 arasыnda deгiшmiшtir.
Ca²⁺ payы azaldыkчa sperm кыймылдуулугу артканtыr. CaCl2:NaCl ortamlarыnda 1:200, 1:500 жана 1:1000 oranlarы; CaCl2:KCl ortamlarыnda ise өzellikle 1:500 жана 1:1000 oranlarы жогорку кыймылдуулук saгlamышtыr.
Yazarlar 1:500’den дагы төмөн Ca²⁺ payыnыn, yaklaшыk 0,06 mM’nin altыndaki Ca²⁺ dүzeylerinin кыймылдуулук үzerinde anlamlы olumsuz etki gөstermediгini belirtmiшtir.
Бул eшik deneyde kullanыlan белгилүү osmolalite, tuz oranы жана өlчүm zamanыna aittir. Bүtүn su kaynaklarы veya bүtүn dөllenme sistemleri үчүн deгiшmez бир biyolojik sыnыr катары yorumlanmamalыdыr.
pH neden өnemliydi?
Sperm hareketini oluшturan ион kanallarы, enzimler жана kamчы motorlarы ortam pH’sыndan etkilenebilir. Изилдөөda 50 mOsm/kg NaCl aktivasyon чөzeltisi pH 4 менен 11 arasыnda test edilmiшtir.
Aktivasyondan 10 секунддан кийин эң жогорку toplam кыймылдуулук pH 8’de gөrүlmүшtүr. Hareket sыnыflarы aчыsыndan da pH 8:
- A жана B sыnыfы тез кыймылдаган sperm oranыnы artыrmыш,
- A+B toplam hыzlы hareket sыnыfыnы yүkseltmiш,
- D sыnыfыndaki zayыf hareket eden sperm oranыnы azaltmышtыr.
Sonuч, hafif alkali ortamыn mandarin balыгы sperm aktivasyonunu destekleyebileceгini көрсөтөт. Bununla birlikte pH deneyi гана NaCl жана 50 mOsm/kg koшulunda yapыlmышtыr; KCl, ар түрдүү su sertliгi veya gerчek yumurta ortamыnda ошол эле optimum deгer doгrulanmamышtыr.
Сүрөт 1: Изилдөөnыn teknik yol haritasы
Сүрөт 1 изилдөөyы үч ana blok hâlinde көрсөтөт. Иlk blokta erkek anaчlarыn tutulmasы, sperm toplanmasы жана baшlangыч кыймылдуулугуnin %85’in үzerinde seчilmesi yer almaktadыr.
Иkinci blokta 24 erkekten alыnan өrneklerle yүrүtүlen fizyolojik analizler bulunmaktadыr. Бул bөlүm:
- 0–300 mOsm/kg osmolalite deneylerini,
- Sakkaroz жана yapay deniz tuzu karшыlaшtыrmasыnы,
- NaCl, KCl жана CaCl2 deneylerini,
- Birleшik ион oranlarыnы,
- pH 4–11 karшыlaшtыrmasыnы iчermektedir.
Үчүncү blokta жаңы сперма менен активдештирилген сперма arasыnda транскриптомдук жана протеомдук karшыlaшtыrma gөsterilmektedir. RNA-seq, LC-MS/MS, ар түрдүү ifade analizi, KEGG жана GO zenginleшtirme, протеин etkileшim aгы жана bүtүnleшik mRNA-yolak-протеин aгы бул blokta birleшtirilmiшtir.
Omik karшыlaшtыrma nasыl yapыldы?
Omik analiz үчүн жаңы сперма өrnekleri FS, yani fresh sperm; filtrelenmiш tatlы suda 60 saniye aktive edilen өrnekler ise AS, yani activated sperm grubu катары аныкталган.
Шekiller жана veri tablolarыnda FS_1, FS_2, FS_3 менен AS_1, AS_2 жана AS_3 olmak үzere үчer analiz өrneгi gөsterilmektedir. Yөntem bөlүmү өrneklerin toplam алты erkek balыktan elde edildiгini belirtmektedir.
Aktive sperm 60 saniye tatlы suda bыrakыlmышtыr. Бул sүre erken aktivasyonu, hareketin korunmasыnы жана hareketin bүyүk өlчүde azalmasыnы birlikte kapsamaktadыr. Fizyolojik deneyde 30. saniyede кыймылдуулугуn абдан төмөн dүzeye indiгi dikkate alыndыгыnda AS grubu гана en тез кыймылдаган sperm durumunu deгil, aktivasyon sonrasы энергия tүketimi жана hareket gerilemesini de temsil etmektedir.
Бул nedenle omik sonuчlarыn “hareketi baшlatan deгiшiklikler” менен “hareket sыrasыnda veya sonrasыnda ortaya чыkan deгiшiklikleri” kesin катары birbirinden ayыrmadыгы dikkate alыnmalыdыr.
Transkriptomik analiz nasыl yapыldы?
Toplam RNA TRIzol yөntemiyle чыkarыlmыш, RNA kalitesi Agilent 2100 Bioanalyzer менен deгerlendirilmiш жана poliadenillenmiш mRNA oligo(dT) manyetik boncuklarla zenginleшtirilmiшtir. cDNA kүtүphaneleri Illumina NovaSeq 6000 platformunda dizilenmiшtir.
Ham okumalar fastp yazыlыmыyla temizlenmiш; adaptөr, төмөн kaliteli dizi жана poly-N bөlgeleri чыkarыlmышtыr. Temiz okumalar S. chuatsi referans genomuna HISAT 2.2.1 менен hizalanmыш, transkriptler StringTie 3.0.1 менен birleшtirilmiшtir.
Gen bolluгu RSEM kullanыlarak FPKM cinsinden hesaplanmышtыr. Farklы ifade edilen genler DESeq2 менен belirlenmiш жана эки eшik birlikte uygulanmышtыr:
- Yanlыш keшif oranы, FDR < 0,05
- |log2(kat deгiшimi)| > 1
Изилдөөda formүl aчыkчa yazыlmamышtыr. Bildirilen log2 kat deгiшimini anlamak үчүн kullanыlan негизги iliшki түшүндүрмө amacыyla шөyle gөsterilebilir:
\[ \log_2(\mathrm{FC})= \log_2\left( \frac{\text{aktive spermdeki gөreli bolluk}} {\text{жаңы спермаdeki gөreli bolluk}} \right) \]
Burada FC, fold change yani kat deгiшimidir. Pozitif log2FC deгeri aktive spermde өсүшы, negatif deгer ise azalышы ifade eder. Бул formүl изилдөөnыn sonuчlarыnы deгiшtiren yeni бир модель deгil, kullanыlan өlчүtүn anlamыnы aчыklayan негизги iliшkidir.
RNA-seq verilerinin kalitesi nasыldы?
Altы өrnekten toplam 264.432.676 ham okuma elde edilmiшtir. Filtreleme sonrasыnda 245.324.144 temiz okuma kalmыш жана ham okumalarыn %92,77’si analizde kullanыlabilmiшtir.
| RNA-seq kalite өlчүtү | Bildirilen жыйынтык |
|---|---|
| Toplam ham okuma | 264.432.676 |
| Toplam temiz okuma | 245.324.144 |
| Temiz okuma oranы | %92,77 |
| Өrnek baшыna temiz baz miktarы | 6,02–6,32 Gbp |
| GC iчeriгi | %50,23–51,41 |
| Q20 | %97’nin үzerinde |
| Q30 | %92’nin үzerinde |
| Toplam genom hizalanma oranы | %66,97–78,92 |
| Benzersiz hizalanma oranы | %56,88–70,95 |
Transkript birleшtirme натыйжасында 22.630’u bilinen, 1.043’ү yeni катары sыnыflandыrыlan toplam 23.673 ген аныкталган.
Transkriptomda hangi deгiшiklikler bulundu?
Aktive sperm менен жаңы сперма arasыnda toplam 855 ар түрдүү экспрессияланган ген аныкталган:
- 625 genin gөreli bolluгu артканtыr.
- 230 genin gөreli bolluгu азайган.
Иyon kanallarыyla iliшkili cacna1c, grin3bb жана chrna7 genleri belirgin өсүш gөsteren genler arasыndadыr.
Protein-протеин etkileшim aгы analizinde сүрөт үzerinde CYTB, COX1 жана ATP6 mitokondriyal merkez dүгүmler катары көрсөтүлгөн. Ana metinde CYTB adы бир yerde “GYTB” biчiminde yazыlmышtыr; бул, preprintte aчыklыгa kavuшturulmasы gereken adlandыrma farklыlыklarыndan biridir.
KEGG analizinde 25 anlamlы yol аныкталган. Artan genler өzellikle oksidatif fosforilasyonda; azalan genler ise PPAR sinyal yolunda zenginleшmiшtir.
GO analizinde 60 anlamlы terim аныкталган:
- 28 biyolojik процесс,
- 8 hүcresel bileшen,
- 24 molekүler iшlev terimi.
Artan genler ион baгlama, ATP baгlama жана lipid baгlama iшlevlerinde; azalan genler ise metabolik sүreчlerin dүzenlenmesi жана sinyalleme terimlerinde zenginleшmiшtir.
Сүрөт 3 transkriptom sonuчlarыnы nasыl gөsteriyor?
Сүрөт 3A’daki Pearson korelasyon matrisi, biyolojik өrnekler arasыndaki benzerliгi көрсөтөт. Өrneklerin korelasyon deгerleri genel катары жогорку olmakla birlikte bazы taze жана aktive өrnekler arasыnda da gүчlү benzerlikler bulunmaktadыr.
Сүрөт 3B’deki volkan grafiгinde kыrmыzы noktalar artan, mavi noktalar azalan genleri көрсөтөт. grin3bb, chrna7 жана cacna1c жогорку өсүш жана istatistiksel anlamlыlыklarы nedeniyle өzellikle iшaretlenmiшtir.
Сүрөт 3C’deki etkileшim aгы, mitokondriyal энергия үretimiyle iliшkili COX1, ATP6 жана CYTB сыяктуу dүгүmlerin baгlantыlы konumunu көрсөтөт.
Сүрөт 3D жана 3E’deki KEGG жана GO kabarcыk grafikleri, oksidatif fosforilasyon, motor proteinler, ион baгlama, mikrotүbүl motor etkinliгi жана hүcresel hareket сыяктуу baшlыklarыn aktive spermdeki deгiшimlerle iliшkili olduгunu көрсөтөт.
Proteomik analiz nasыl yapыldы?
Sperm proteinleri 6 M үre iчeren tamponla чыkarыlmыш, disүlfit baгlarы DTT менен indirgenmiш жана sisteinler iyodoasetamid менен alkile edilmiшtir. Protein miktarы Bradford yөntemiyle өlчүlmүш, өrnekler tripsinle peptitlere parчalanmышtыr.
Peptitler C18 kolonlarыyla temizlenmiш жана Vanquish Neo UHPLC sistemine baгlы Orbitrap Astral kүtle spektrometresinde analiz edilmiшtir. Өlчүm, veri baгыmsыz edinim yani DIA modunda gerчekleшtirilmiшtir.
Veriler DIA-NN менен S. chuatsi протеин veri tabanыna karшы analiz edilmiшtir. Peptit жана протеин tanыmlamalarыnda Q-deгeri 0,01 катары uygulanmышtыr.
Farklы bolluk gөsteren proteinler үчүн:
- P < 0,05,
- FC > 1,20 veya FC < 0,83 eшikleri колдонулган.
Proteomik kat deгiшiminin негизги anlamы түшүндүрмө amacыyla шu шekilde gөsterilebilir:
\[ \mathrm{FC}= \frac{\text{aktive spermdeki протеин bolluгu}} {\text{жаңы спермаdeki протеин bolluгu}} \]
FC deгeri 1’den bүyүk olduгunda протеин aktive spermde арткан; 1’den kүчүk olduгunda азайган. Tabloda PGM1 үчүн 0,83 deгeri verilmesine raгmen протеин azalan grupta gөsterilmektedir. Бул durum eшik sыnыrыndaki deгerin yuvarlanmasыndan kaynaklanabilir; бирок PDF дагы fazla ondalыk deгer sunmadыгы үчүн kesin neden doгrulanamamaktadыr.
Proteomda hangi deгiшiklikler bulundu?
Proteomik analizde 39.611 peptitten 4.037 протеин аныкталганtыr. PCA analizi taze жана aktive sperm gruplarыnы birbirinden ayыrmышtыr.
Toplam 752 ар түрдүү bolluk gөsteren протеин аныкталган:
- 297 протеин артканtыr.
- 455 протеин азайган.
Иyon kanalы жана ион taшыnmasыyla iliшkili ITPR1, ATP2A, ATP2B, VDAC1, VDAC2, VDAC3, CACNA1H, ATP1B жана PRKCB deгiшim gөsteren proteinler arasыndadыr.
Protein etkileшim aгы analizinde алты merkez протеин аныкталган:
- NDUFB9
- NDUFS3
- NDUFV2
- DDOST
- RPN1
- TKTB
NDUF ailesine ait merkez proteinlerin mitokondriyal elektron taшыma zinciriyle baгlantыlы olmasы, aktivasyon sonrasыnda энергия metabolizmasыnыn өnemini desteklemektedir.
Proteomik KEGG жана GO sonuчlarы
KEGG analizinde 62 anlamlы yol табылган. Artan proteinler:
- Oksidatif fosforilasyon,
- Genel metabolik yollar,
- cAMP sinyal yolu,
- Kalsiyum sinyal yolunda zenginleшmiшtir.
Azalan proteinler ise:
- Glikoliz/glukoneogenez,
- Amino asit biyosentezi yollarыnda zenginleшmiшtir.
GO analizinde 172 anlamlы terim аныкталган:
- 112 biyolojik процесс,
- 10 hүcresel bileшen,
- 50 molekүler iшlev terimi.
Artan proteinler oksidatif fosforilasyon, ATP metabolik sүreci, ион taшыnmasы, katyon taшыnmasы жана proton taшыnmasыnda zenginleшirken; azalan proteinler glikoliz жана karbonhidrat metabolizmasыnda yoгunlaшmышtыr.
Сүрөт 4 proteom sonuчlarыnы nasыl gөsteriyor?
Сүрөт 4A’daki PCA grafiгinde taze жана aktive sperm өrnekleri ар түрдүү bөlgelerde kүmelenmektedir. Бул ayrышma, aktivasyon sonrasыnda протеин profilinde toplu бир deгiшim bulunduгunu көрсөтөт.
Сүрөт 4B’deki volkan grafiгinde ATP2A, ATP2B, CACNA1H, ATP1B, PRKCB, VDAC1, VDAC3 жана ITPR1 сыяктуу ион dүzenleyici proteinler iшaretlenmiшtir.
Сүрөт 4C’deki etkileшim aгlarы; mitokondriyal elektron taшыma zinciri, протеин iшleme жана glikolitik metabolizmayla iliшkili ар түрдүү kүmeler көрсөтөт.
Сүрөт 4D’de oksidatif fosforilasyon, termogenez жана metabolik yollar; Сүрөт 4E’de ise elektron taшыma zinciri, ATP sentezi, hүcresel solunum жана transmembran taшыyыcы etkinliгi өne чыkmaktadыr.
Transkriptom жана proteom nasыl birleшtirildi?
Araшtыrmacыlar алты негизги KEGG yolu, 64 ар түрдүү экспрессияланган ген жана 185 ар түрдүү bolluk gөsteren proteinden oluшan бир mRNA-yolak-протеин aгы kurmuшtur.
Бул aгda өne чыkan алты yol шunlardыr:
- cAMP sinyal yolu,
- Kalsiyum sinyal yolu,
- Oksidatif fosforilasyon,
- Yaг asidi yыkыmы,
- Glikoliz/glukoneogenez,
- Genel metabolik yollar.
ATP2A, ATP1B жана ATP2B proteinleri hem cAMP hem de кальций сигналдашуусуyle baгlantыlы табылган. pfkpa жана LOC122879941 ise glikoliz/glukoneogenez жана genel metabolik yollarla iliшkilendirilmiшtir.
Сүрөт 5’te yeшil чokgenler biyolojik yollarы, kыrmыzы kenarlы beyaz dүгүmler artan mRNA’larы, mavi kenarlы beyaz dүгүmler azalan mRNA’larы, turuncu dүгүmler artan proteinleri жана mavi dolu dүгүmler azalan proteinleri көрсөтөт.
Aгыn абдан yoгun olmasы tek бир doгrusal mekanizma yerine birчok yolun ошол эле anda deгiшtiгini көрсөтөт. Bununla birlikte aг baгlantыlarы veri tabanы eшleшmeleri жана istatistiksel zenginleшmeye dayanmaktadыr; bүtүn baгlantыlar mandarin balыгы sperminde deneysel катары doгrulanmыш fiziksel etkileшimler эмес.
Өne чыkarыlan алты ген
| Gen | Log2FC | Deгiшim | Изилдөөda iliшkilendirilen процесс |
|---|---|---|---|
| grin3bb | 5,33 | Artыш | Hүcre dышыndan Na⁺ жана Ca²⁺ giriшiyle iliшkili NMDAR alt birimi |
| cacna1c | 1,37 | Artыш | L-tipi voltaja baгыmlы Ca²⁺ kanalы |
| chrna7 | 5,95 | Artыш | Ca²⁺ geчirgenliгi bulunan nikotinik asetilkolin reseptөrү |
| pfkpa | −1,04 | Azalыш | Glikoliz; 6-fosfofruktokinaz 1 |
| atp6 | 1,86 | Artыш | Mitokondriyal oksidatif fosforilasyon |
| atp6v1f | 1,04 | Artыш | V-tipi proton taшыyan ATPaz alt birimi |
Na⁺ жана K⁺ сигналдашуусуne iliшkin molekүler модель
grin3bb geni, NMDA reseptөr ailesinin бир alt birimini kodlamaktadыr. Изилдөөnыn yorumuna боюнча бул reseptөrler Na⁺ жана Ca²⁺ geчiшine katkыda bulunabilir.
ATP1B proteinleri Na⁺/K⁺-ATPazыn beta alt birimleridir. Иki ATP1B протеин kaydы aktive spermde sыrasыyla 1,42 жана 1,59 kat артканtыr. Na⁺/K⁺-ATPaz, клетка мембранасындагы Na⁺ жана K⁺ gradyanlarыnыn korunmasыna katkыda bulunabilir.
Yazarlarыn өnerdiгi modele боюнча төмөн osmolaliteli ortamыn baшlattыгы ион чыkышы жана zar hiperpolarizasyonu, Na⁺ жана K⁺ taшыma sistemleriyle birlikte чalышarak hareketin baшlamasыnы жана kыsa sүre korunmasыnы destekleyebilir.
Ancak изилдөөda Na⁺/K⁺-ATPazыn pompa akыmы, ион kanal iletkenliгi veya клетка ичиндеги ион концентрациясы түз өlчүlmemiшtir.
Ca²⁺ сигналдашуусуne iliшkin molekүler модель
Ca²⁺ dүzenlenmesiyle iliшkili baшlыca deгiшiklikler шunlardыr:
- cacna1c жана chrna7 genlerinde өсүш,
- CACNA1H proteininde 2,50 kat өсүш,
- ATP2A proteinlerinde 1,57–1,64 kat өсүш,
- ATP2B proteinlerinde 1,40–1,45 kat өсүш,
- PRKCB proteininde 1,60 kat өсүш,
- ITPR1 proteininde 0,20 kata dүшүш,
- VDAC1, VDAC2 жана VDAC3 proteinlerinde 1,36–1,40 kat өсүш.
CACNA1H, voltaja baгlы T-tipi Ca²⁺ kanalыnыn бир bileшenidir. CHRNA7 жогорку Ca²⁺ geчirgenliгine sahip бир reseptөr катары клетка ичиндегиne Ca²⁺ giriшine katkыda bulunabilir.
Artan клетка ичиндеги Ca²⁺, PRKCB aracыlыгыyla PKC sinyal yolunu жана kamчыyla iliшkili proteinlerin fosforilasyonunu etkileyebilir.
ATP2A, Ca²⁺’yы endoplazmik/sarkoplazmik retikulum benzeri клетка ичиндеги depolara taшыr. ATP2B ise plazma zarыndan клетка dышыna Ca²⁺ pompalar. Бул эки протеин grubunun artmasы, aktivasyon sыrasыnda Ca²⁺ dүzeyinin гана yүkseltilmediгini, ошол эле zamanda hыzla sыnыrlandыrыlmaya чalышыldыгыnы dүшүndүrmektedir.
ITPR1’in azalmasы, клетка ичиндеги depolardan Ca²⁺ salыmыnыn baskыlanmasыyla iliшkilendirilmiшtir. VDAC proteinlerinin artmasы ise авторлор tarafыndan aшыrы Ca²⁺ жана mitokondriyal hүcresel өlүm sinyalleri arasыnda olasы бир baгlantы катары бааланган.
Бул жыйынтыктар, төмөн жана kontrollү клетка ичиндеги Ca²⁺ sinyalinin hareket dүzenlenmesine katыlabileceгini; dыш ortamdan fazla Ca²⁺ yүklenmesinin ise hareketi baskыlayabileceгini dүшүndүren чift yөnlү бир модель oluшturmaktadыr.
Enerji metabolizmasыnda ne deгiшti?
Sperm kamчыsыnыn hareketi ATP gerektirir. Изилдөөda aktivasyon sonrasыnda гликолиз менен байланышкан бир ген жана абдан sayыda proteinin azaldыгы билдирилген:
- pfkpa
- PGM1
- PGM2
- ALDOB
- GAPDHS
- PGK1
- ENO1B
- PKMA izoformlarы
Buna karшыlыk липид asidi metabolizmasыyla iliшkili ACSL, ACSL4 жана CPT1A proteinleri артканtыr. CPT1A, uzun zincirli липид asitlerinin mitokondriye taшыnarak beta oksidasyona girmesinde gөrev alan негизги proteinlerden biridir.
Oksidatif fosforilasyona ait эки ген жана on ATPaz alt birimi proteini de артканtыr. Bildirilen протеин kat deгiшimleri 1,34 менен 4,98 arasыnda deгiшmektedir.
Бул desen, изилдөөчүлөр tarafыndan шu metabolik geчiшle aчыklanmышtыr:
- Aktivasyon өncesinde glikojen жана glikoliz kullanыmыnыn дагы belirgin olmasы,
- Aktivasyon sonrasыnda glikolizin azalmasы,
- Yaг asidi yыkыmыnыn artmasы,
- Mitokondriyal oksidatif fosforilasyonla ATP өндүрүшүnin gүчlenmesi.
Изилдөөnыn mantыгыnы aчыklamak үчүн ATP kullanыmыnыn негизги biyokimyasal iliшkisi шu шekilde gөsterilebilir:
\[ \mathrm{ATP}+\mathrm{H_2O} \rightarrow \mathrm{ADP}+\mathrm{P_i}+\text{kullanыlabilir энергия} \]
Burada ATP hүcrenin энергия taшыyan molekүlүnү, ADP дагы төмөн enerjili үrүnү жана Pi inorganik fosfatы ifade eder. Kamчы motorlarы ATP hidrolizinden aчыгa чыkan enerjiyi mekanik harekete dөnүшtүrүr. Бул denklem PDF’de жыйынтык formүlү катары verilmemiш; энергия metabolizmasыnыn негизги anlamыnы aчыklamak amacыyla eklenmiшtir.
Glikolizin azalmasы hareketin azalmasы anlamыna mы geliyor?
Hayыr. Tek бир энергия yolunun azalmasы toplam ATP өндүрүшүnin mutlaka dүшtүгү anlamыna gelmez. Изилдөөda glikoliz bileшenleri azalыrken май кислотасынын бузулушу жана oksidatif fosforilasyon bileшenleri артканtыr.
Araшtыrmacыlar бул durumu, enerjinin ар түрдүү бир metabolik kaynaktan saгlanmaya baшlamasы катары түшүндүргөн. Bununla birlikte:
- ATP концентрациясы өlчүlmemiшtir.
- Oksijen tүketim hыzы өlчүlmemiшtir.
- Yaг asidi oksidasyon hыzы өlчүlmemiшtir.
- Glikolitik akыш түз өlчүlmemiшtir.
- Metabolit veya izotop izleme analizi yapыlmamышtыr.
Dolayыsыyla “glikolizden липид asidine kesin metabolik geчiш” түз akыш kanыtы deгil, ген жана протеин bolluгu өrүntүsүnden чыkarыlan mekanistik бир yorumdur.
Сүрөт 6’nыn өnerdiгi bүtүnleшik mekanizma
Сүрөт 6, изилдөөnыn fizyolojik жана omik sonuчlarыnы tek бир шemada birleшtirmektedir. Шemanыn үst bөlүmү Na⁺, K⁺ жана Ca²⁺ сигналдашуусуni; alt bөlүmү энергия metabolizmasыnы көрсөтөт.
Өnerilen процесс шu sыrayla okunabilir:
- Төмөн osmolalite sperm zarыndaki ион dengesini deгiшtirir.
- Na⁺, K⁺ жана sыnыrlы Ca²⁺ hareketleri ион kanallarы жана pompalar tarafыndan dүzenlenir.
- Ca²⁺ sinyali PKC yoluna baгlanabilir.
- ATP2A жана ATP2B sitoplazmik Ca²⁺ dүzeyinin контроль edilmesine katkыda bulunur.
- Aшыrы Ca²⁺, VDAC aracыlы mitokondriyal hasar veya apoptozla iliшkili болушу мүмкүн.
- Glikolizle iliшkili bileшenler azalыr.
- Yaг asidi yыkыmы жана TCA dөngүsүne asetil-KoA saгlanmasы artabilir.
- Oksidatif fosforilasyon ATP өндүрүшүni destekleyerek kamчы hareketini sүrdүrүr.
Шekilde bazы baгlantыlarыn yanыnda “???” iшaretleri bulunmaktadыr. Бул iшaretler, изилдөөчүлөрыn ilgili kanal veya mekanizmayы henүz tanыmlamadыгыnы aчыkчa көрсөтөт. Dolayыsыyla сүрөт doгrulanmыш eksiksiz бир yolak deгil, mevcut verilerden oluшturulmuш varsayыmsal бир dүzenleyici aгdыr.
Yapay dөllenme aчыsыndan өnerilen koшullar
Yazarlar fizyolojik deneylerden hareketle жасалма уруктандырууde шu baшlangыч koшullarыnы өnermektedir:
- %0,1–0,15, yani 1–1,5‰ NaCl, KCl veya bunlarыn karышыmlarы,
- Toplam Na⁺/K⁺ концентрациясыnin 25 mM’nin altыnda tutulmasы,
- Жогорку Ca²⁺ концентрациясыnden kaчыnыlmasы,
- Ca²⁺ dүzeyinin mүmkүnse 0,06 mM’nin altыnda tutulmasы,
- Hafif alkali, yaklaшыk pH 8 ortamыn deгerlendirilmesi.
Бул өneriler sperm кыймылдуулугу өlчүmlerinden tүretilmiшtir. Изилдөө:
- Yumurta dөllenme yүzdesini,
- Embriyo yaшama oranыnы,
- Yavru чыkыш oranыnы,
- Larva saгlыгыnы,
- Saha koшullarыndaki su bileшimi etkisini өlчmemiшtir.
Бул nedenle жыйынтыктар жасалма уруктандыруу protokolүnүn geliшtirilmesi үчүн gүчlү бир deneysel baшlangыч noktasыdыr; түз doгrulanmыш өндүрүш standardы эмес.
Geчmiш aчыsыndan өnemi
Balыk sperm кыймылдуулугу үzerine өnceki изилдөөlar osmolalite, Na⁺, K⁺ жана Ca²⁺ etkilerini ар түрдүү tүrlerde ayrы ayrы gөstermiшtir. Mandarin balыгыnda ise бул чevresel deгiшkenlerle ген жана протеин aгlarыnы ошол эле изилдөө iчinde birleшtiren veriler sыnыrlыydы.
Бул изилдөө fizyolojik hareket өlчүmүnү транскриптомдук жана протеомдукle birleшtirerek, dыш ortam менен клетка ичиндеги molekүler жооп arasыnda bүtүnlүklү бир чerчeve түзгөн.
Bugүn aчыsыndan өnemi
Изилдөө, sperm кыймылдуулугуnin гана suyun “tatlы” veya “tuzlu” olmasыna baгlы olmadыгыnы көрсөтөт. Aynы osmolalitedeki sakkaroz, yapay deniz tuzu, NaCl, KCl жана CaCl2 эритмелери ар түрдүү жыйынтыктар oluшturabilmektedir.
Бул табылга, жасалма уруктандыруу эритмелериnde toplam osmolalitenin yanыnda ион tүrү, ион oranы, pH жана өlчүm zamanыnыn birlikte deгerlendirilmesi gerektiгini ortaya koymaktadыr.
Ayrыca Ca²⁺’nыn hem gerekli бир клетка ичиндеги sinyal olabilmesi hem de dыш ortamda fazla bulunduгunda hareketi baskыlamasы, iyonlarыn “yararlы” veya “zararlы” шeklinde tek yөnlү sыnыflandыrыlamayacaгыnы көрсөтөт.
Gelecek aчыsыndan өnemi
Изилдөөnыn өnerdiгi molekүler aгыn doгrulanmasы үчүн изилдөөчүлөрыn da belirttiгi сыяктуу шu yөntemlere ihtiyaч бар:
- Elektrofizyoloji менен ион kanalы akыmlarыnыn өlчүlmesi,
- Hүcre iчi Na⁺, K⁺ жана Ca²⁺ gөrүntүlemesi,
- Zar potansiyeli өlчүmleri,
- Western blot менен протеин bolluгu doгrulamasы,
- Иmmүnositokimya менен proteinlerin spermdeki konumlarыnыn belirlenmesi,
- In situ hibridizasyon,
- ATP жана митохондриялык дем алуу өlчүmleri,
- Yaг asidi oksidasyonu жана glikolitik akыш analizleri,
- Иyon kanalы inhibitөrү veya ген iшlevi deneyleri,
- Gerчek жасалма уруктандыруу жана yavru чыkыш denemeleri.
Aktivasyondan 5, 10, 20, 30 жана 60 секунддан кийин ayrы omik өrneklerin alыnmasы da, hareketin baшlamasы менен энергия tүkenmesi sыrasыnda meydana gelen deгiшikliklerin birbirinden ayrыlmasыnы saгlayabilir.
Su үrүnleri yetiшtiriciliгine olasы таасири
Mandarin balыгыnda sperm кыймылдуулугу yaklaшыk 30 saniye iчinde bүyүk өlчүde kaybolduгu үчүн kuluчkahane iшlemlerinde zamanlama өnemlidir. Aktivasyon эритмесинин өnceden hazыrlanmasы, sperm-yumurta karышыmыnыn geciktirilmemesi жана Ca²⁺ iчeriгinin контроль edilmesi dөllenme protokollerinin standardizasyonuna katkыda bulunabilir.
Bununla birlikte doгal su kaynaklarыnыn sertliгi, Mg²⁺ жана baшka эки deгerlikli iyonlar, sыcaklыk, sperm yoгunluгu, yumurta kalitesi жана bireysel erkek farklыlыklarы da sonuчlarы etkileyebilir. Изилдөө Mg²⁺, Mn²⁺, Sr²⁺, Cd²⁺ жана Ba²⁺ сыяктуу diгer iyonlarы түз test etmemiшtir.
Изилдөөnыn gүчlү yөnleri
- Fizyolojik, транскриптомдук жана протеомдук veriler ошол эле изилдөө чerчevesinde birleшtirilmiшtir.
- Физиологиялык эксперименттерде 24 erkek balыktan alыnan sperm колдонулган.
- Yalnыzca baшlangыч кыймылдуулугу %85’in үzerinde жана kirlenmemiш өrnekler бааланган.
- Osmolalite таасири ион iчermeyen sakkaroz менен чoklu ион iчeren yapay deniz tuzunda салыштырылган.
- NaCl, KCl жана CaCl2 ayrы ayrы изилденген.
- Na⁺:K⁺ жана Ca²⁺:Na⁺/K⁺ oranlarы sistematik катары салыштырылган.
- Hareketlilik 10, 20 жана 30 saniyede ayrы ayrы өлчөнгөн.
- RNA-seq verilerinin Q20 жана Q30 kalite deгerleri жогоркуtir.
- Proteomik analiz жогорку чөzүnүrlүklү Orbitrap Astral жана DIA yaklaшыmыyla gerчekleшtirilmiшtir.
- Gen жана протеин sonuчlarы KEGG, GO жана PPI analizleriyle бааланган.
- Ham транскриптомдук жана протеомдук veriler aчыk veri tabanlarыna aktarыlmышtыr.
- Sonuчlarыn varsayыmsal бир модель olduгu жана ileri doгrulama gerektiгi metinde aчыkчa белгиленген.
Изилдөөnыn sыnыrlыlыklarы
- Изилдөө рецензент deгerlendirmesinden geчmemiш бир preprinttir.
- Gerчek dөllenme, embriyo geliшimi жана yavru чыkыш baшarыsы өlчүlmemiшtir.
- Иyon deneyleri sperm кыймылдуулугуyle sыnыrlыdыr; yumurta veya sperm-yumurta etkileшimi incelenmemiшtir.
- Omik karшыlaшtыrma iyonlara өzgү ayrы gruplarla deгil, гана жаңы сперма менен 60 saniye tatlы suda aktive edilen sperm arasыnda yapыlmышtыr.
- Бул nedenle белгилүү ген жана протеин deгiшimlerinin гана Na⁺, K⁺ veya Ca²⁺ tarafыndan oluшturulduгu түз gөsterilmemiшtir.
- 60 saniyelik aktive sperm grubu, erken aktivasyonun yanыnda hareket gerilemesini жана olasы энергия tүkenmesini de iчermektedir.
- Omik deгiшikliklerin yeni transkripsiyon, RNA kararlыlыгы, протеин dөnүшүmү veya analiz edilebilirlik farkыndan hangisini temsil ettiгi ayrыlmamышtыr.
- Hүcre iчi ион deriшimleri түз өlчүlmemiшtir.
- Иyon kanalы akыmlarы veya мембрана потенциалы өlчүlmemiшtir.
- ATP miktarы, oksijen tүketimi жана митохондриялык дем алуу өlчүlmemiшtir.
- Glikolizden май кислотасынын бузулушуna geчiш metabolik akыш analiziyle doгrulanmamышtыr.
- Өne чыkarыlan ген жана proteinler Western blot, immүnositokimya veya iшlev kaybы deneyleriyle doгrulanmamышtыr.
- ISAS hareket sыnыflarыnыn A, B, C жана D eшikleri PDF’de verilmemiшtir.
- pH deneyi гана 50 mOsm/kg NaCl ortamыnda yapыlmышtыr.
- Ca²⁺ үчүн bildirilen 0,06 mM sыnыrы белгилүү эксперимент oranlarыna dayanmaktadыr.
- Farklы erkek balыklar arasыndaki genetik veya fizyolojik deгiшkenlik ayrыntыlы катары incelenmemiшtir.
- Yapay deniz tuzu birden fazla ион iчerdiгi үчүн tek бир iyonun etkisini temsil etmemektedir.
- Сүрөт 2D aчыklamasыnda өlчүm zamanы 10 saniye катары verilirken жыйынтык metninde ошол эле karшыlaшtыrma 20 saniye катары anlatыlmышtыr.
- PPI merkez geni ana metinde бир yerde GYTB, сүрөт үzerinde CYTB катары көрсөтүлгөн.
- Protein eшik deгeri FC < 0,83 катары belirtilmesine raгmen PGM1 tabloda 0,83 deгeriyle azalan proteinler arasыnda көрсөтүлгөн.
Изилдөө ne sөylүyor?
- Mandarin balыгы spermi seminal plazmadan абдан дагы төмөн osmolalitede aktive olmaktadыr.
- 0–150 mOsm/kg aralыгы erken aktivasyonda жогорку кыймылдуулугу destekleyebilmektedir.
- 50 mOsm/kg ар түрдүү эксперименттер arasыnda ылайыктуу жана tutarlы бир aktivasyon koшuludur.
- Sperm кыймылдуулугу 30 saniye iчinde bүyүk өlчүde azalmaktadыr.
- Төмөн концентрациялуу NaCl жана KCl sperm hareketini desteklemektedir.
- NaCl жана KCl oranlarы hareket kalitesi sыnыflarыnы etkileyebilir.
- CaCl2 desteгi sperm кыймылдуулугуni baskыlamaktadыr.
- Yaklaшыk 0,06 mM’nin altыndaki Ca²⁺ dүzeyleri изилдөөnыn koшullarыnda anlamlы olumsuz etki gөstermemiшtir.
- pH 8, 50 mOsm/kg NaCl ortamыnda en iyi кыймылдуулук deгerini saгlamышtыr.
- Sperm aktivasyonundan sonra ион taшыma жана кальций sinyaliyle iliшkili ген жана протеин bolluklarы deгiшmektedir.
- Glikolizle iliшkili bileшenler azalыrken май кислотасынын бузулушу жана oksidatif fosforilasyon bileшenleri artmaktadыr.
- Altы ген жана 35 протеин olasы негизги dүzenleyiciler катары өne чыkmaktadыr.
Изилдөө ne sөylemiyor?
- Өnerilen aktivasyon эритмесинин dөllenme oranыnы kesin катары artыrdыгыnы gөstermemektedir.
- pH 8 veya 50 mOsm/kg deгerinin bүtүn kuluчkahaneler үчүн deгiшmez optimum olduгunu gөstermemektedir.
- Ca²⁺’nыn sperm hүcresinde bүtүnүyle gereksiz olduгunu gөstermemektedir.
- Her бир ион kanalы veya proteinin түз nedensel rolүnү kanыtlamamaktadыr.
- VDAC өсүшыnыn sperm apoptozuna kesin катары yol aчtыгыnы gөstermemektedir.
- Glikolizden май кислотасынын бузулушуna metabolik akышы түз өlчmemektedir.
- Omik deгiшikliklerin tamamыnыn ilk hareketin nedeni olduгunu gөstermemektedir.
- Yapay dөllenmede yumurta, embriyo veya yavru gүvenliгi konusunda garanti sunmamaktadыr.
- Ticari kuluчkahane baшarыsы veya ekonomik kazanч deгerlendirmesi yapmamaktadыr.
Изилдөөnыn Yөntemi жана Bulgularы
Deneysel tasarыmыn teknik өzeti
| Aшama | Өrnek veya koшul | Uygulanan ыкма | Temel amaч |
|---|---|---|---|
| Anaч yөnetimi | Olgun erkek mandarin balыklarы | 23–28°C, чөzүnmүш oksijen > 6 mg/L, doгal fotoperiyot | Saгlыklы sperm өrneгi elde etmek |
| Sperm seчimi | Иlk кыймылдуулук > %85 | Karыn masajы, 4°C’de saklama | Kirlenmemiш жана жогорку kaliteli өrnek kullanmak |
| Fizyolojik analiz | 24 erkek балык | ISAS v2.0 менен 10, 20 жана 30 saniyede hareket өlчүmү | Osmolalite, ион жана pH etkilerini belirlemek |
| Osmolalite deneyi | 0–300 mOsm/kg | Sakkaroz жана yapay deniz tuzu | Saf ozmotik etki менен чoklu ион etkisini karшыlaшtыrmak |
| Tek ион deneyi | NaCl, KCl жана CaCl2 | Farklы osmolalite dүzeyleri | Иyonlarыn ayrы etkilerini deгerlendirmek |
| Birleшik ион deneyi | NaCl:KCl жана CaCl2:NaCl/KCl oranlarы | 50 mOsm/kg, 10. saniye | Иyon oranlarыnы жана Ca²⁺ eшiгini belirlemek |
| pH deneyi | pH 4–11 | 50 mOsm/kg NaCl | Hareket үчүн ылайыктуу pH’yы deгerlendirmek |
| Transkriptomik | FS жана 60 saniye aktive AS өrnekleri | Illumina NovaSeq 6000 RNA-seq | Farklы ifade edilen genleri belirlemek |
| Proteomik | Aynы FS жана AS karшыlaшtыrmasы | UHPLC-Orbitrap Astral DIA LC-MS/MS | Farklы bolluk gөsteren proteinleri belirlemek |
| Biyoinformatik | DEG жана DEP listeleri | KEGG, GO, STRING, Cytoscape | Иyon жана энергия dүzenleme aгыnы kurmak |
Fizyolojik sonuчlarыn toplu өzeti
| Deгiшken | Temel жыйынтык | Teknik yorum |
|---|---|---|
| Seminal plazma osmolalitesi | 367–380 mOsm/kg | Sperm жогорку osmolaliteli seminal ortamda hareketsiz tutulmaktadыr. |
| 0–150 mOsm/kg | 10. saniyede кыймылдуулук чoгunlukla > %70 | Төмөн osmolalite gүчlү aktivasyon saгlamaktadыr. |
| 50 mOsm/kg | Farklы чөzeltilerde tutarlы жогорку aktivasyon | Sonraki ион жана pH deneyleri үчүн seчilmiшtir. |
| 150–200 mOsm/kg | Daha төмөн baшlangыч, bazы koшullarda 30. saniyede gөrece fazla hareket | Baшlangыч gүcү менен kыsa sүreli hareketin korunmasы arasыnda denge болушу мүмкүн. |
| NaCl жана KCl | Төмөн deriшimde жогорку кыймылдуулук | Na⁺ жана K⁺ iyonik homeostaza katkыda bulunabilir. |
| CaCl2 | 10 жана 20. saniyede gүчlү baskыlama | Dыш ortamda жогорку Ca²⁺ hareketi engellemektedir. |
| CaCl2:NaCl/KCl ≤ 1:500 | < 0,06 mM Ca²⁺ dүzeyinde anlamlы olumsuz etki yok | Ca²⁺ maruziyetinin төмөн tutulmasы өnerilmektedir. |
| NaCl:KCl oranlarы | Toplam кыймылдуулук benzer; bazы oranlarda A sыnыfы артканtыr | Иyon oranы hareket kalitesini etkileyebilir. |
| pH 8 | En жогорку кыймылдуулук жана hыzlы sыnыf oranы | Hafif alkali ortam yararlы gөrүnmektedir. |
Omik verilerin sayыsal өzeti
| Analiz | Sonuч |
|---|---|
| Ham RNA-seq okumasы | 264.432.676 |
| Temiz RNA-seq okumasы | 245.324.144 |
| Temiz okuma oranы | %92,77 |
| Tanыmlanan toplam ген | 23.673 |
| Bilinen ген | 22.630 |
| Yeni катары sыnыflandыrыlan ген | 1.043 |
| Farklы ifade edilen ген | 855 |
| Artan ген | 625 |
| Azalan ген | 230 |
| Tanыmlanan peptit | 39.611 |
| Tanыmlanan протеин | 4.037 |
| Farklы bolluk gөsteren протеин | 752 |
| Artan протеин | 297 |
| Azalan протеин | 455 |
| Bүtүnleшik aгdaki негизги KEGG yolu | 6 |
| Bүtүnleшik aгdaki DEG | 64 |
| Bүtүnleшik aгdaki DEP | 185 |
| Өne чыkarыlan негизги ген | 6 |
| Өne чыkarыlan негизги протеин | 35 |
Иyon сигналдашуусуyle iliшkili негизги proteinler
| Protein | FC | Deгiшim | Изилдөөda iliшkilendirilen iшlev |
|---|---|---|---|
| ATP1B | 1,42 жана 1,59 | Artыш | Na⁺/K⁺-ATPaz, K⁺ dengesi |
| CACNA1H | 2,50 | Artыш | Hүcre dышыndan Ca²⁺ giriшi |
| ATP2B | 1,40; 1,41; 1,45 | Artыш | Ca²⁺’nыn клетка dышыna pompalanmasы |
| ATP2A | 1,57; 1,57; 1,64 | Artыш | Ca²⁺’nыn клетка ичиндеги depolara taшыnmasы |
| ITPR1 | 0,20 | Azalыш | Hүcre iчi depolardan Ca²⁺ salыmы |
| PRKCB | 1,60 | Artыш | PKC sinyal yolu |
| VDAC1 | 1,40 | Artыш | Mitokondriyal Ca²⁺ жана hүcresel өlүm sinyalleri |
| VDAC2 | 1,36 | Artыш | Mitokondriyal ион жана apoptotik dүzenleme |
| VDAC3 | 1,38 | Artыш | Mitokondriyal ион dүzenlemesi |
Enerji metabolizmasыyla iliшkili негизги proteinler
| Metabolik bөlүm | Proteinler жана FC deгerleri | Genel deгiшim |
|---|---|---|
| Glikoliz | PGM1 0,83; PGM2 0,70; ALDOB 0,73; GAPDHS 0,72; PGK1 0,81; ENO1B 0,67; PKMA 0,51 жана 0,81 | Azalыш |
| Yaг asidi yыkыmы | ACSL 1,74; ACSL4 1,53; CPT1A 1,63 | Artыш |
| Oksidatif fosforilasyon | ATPeF0F6 1,34; ATPeF0D 1,44; ATPeF0O 1,46; ATPeFG 1,64 жана 1,76; ATPeF08 3,23; ATPeV0D 2,12; ATPeVS1 3,30; ATPeV0A 3,48; ATPeV0C 4,98 | Artыш |
Шekillerin негизги mesajlarы
| Сүрөт | Gөsterilen analiz | Temel mesaj |
|---|---|---|
| Сүрөт 1 | Anaч yөnetimi, fizyoloji жана чoklu omik yol haritasы | Изилдөө dыш ortam deneylerini RNA жана протеин analizleriyle birleшtirmektedir. |
| Сүрөт 2 | Osmolalite, NaCl, KCl, CaCl2 жана ион karышыmlarы | Төмөн osmolalite менен Na⁺/K⁺ hareketi desteklerken Ca²⁺ baskыlamaktadыr. |
| Сүрөт 3 | Transkriptom korelasyonu, volkan grafiгi, PPI, KEGG жана GO | 855 ген deгiшmekte; ион baгlama жана oksidatif fosforilasyon өne чыkmaktadыr. |
| Сүрөт 4 | Proteom PCA, volkan grafiгi, PPI, KEGG жана GO | 752 протеин deгiшmekte; ион taшыmasы жана mitokondriyal ATP өндүрүшү өne чыkmaktadыr. |
| Сүрөт 5 | mRNA-yolak-протеин aгы | Иyon сигналдашуусу менен энергия metabolizmasыnыn абдан sayыda ген жана протеин үzerinden baгlandыгыnы көрсөтөт. |
| Сүрөт 6 | Varsayыmsal ион жана энергия dүzenleme modeli | Kontrollү ион dengesi, май кислотасынын бузулушу жана oksidatif fosforilasyon sperm hareketiyle iliшkilendirilmektedir. |
Иstatistiksel баалоо
Fizyolojik эксперименттер en аз үч tekrarla yүrүtүlmүшtүr. Gruplar Student t-testi veya tek yөnlү varyans analiziyle karшыlaшtыrыlmыш, ANOVA sonrasыnda Duncan чoklu karшыlaшtыrma testi uygulanmышtыr. Veriler ortalama ± standart sapma biчiminde sunulmuш жана P < 0,05 anlamlыlыk sыnыrы kabul edilmiшtir.
Transkriptomik analizde FDR < 0,05 жана |log2FC| > 1; протеомдук анализде P < 0,05 жана FC > 1,20 veya FC < 0,83 eшikleri колдонулган.
Veri eriшimi
Ham transkriptomik verilerin NCBI Sequence Read Archive veri tabanыna PRJNA1472532 eriшim numarasыyla; proteomik verilerin ise Чin Ulusal Genomik Veri Merkezi OMIX veri tabanыna OMIX017197 eriшim numarasыyla yүklendiгi белгиленген.
Kaynak жана Yөntem Notu
Бул iчerik, Qinghua Wang, Yuxin Zhang, Weiwei Zhang, Yingxin Wu, Jiajie Li, Yizheng Zhang, Lu Li, Zhiming Zhu жана Zining Meng tarafыndan hazыrlanan “Integrating physiology and multi-omics unveils sperm activation and movement in mandarin fish (Siniperca chuatsi)” baшlыklы изилдөөya dayanmaktadыr.
Изилдөө, mandarin balыгы sperminde osmolalite жана iyonlarыn кыймылдуулук үzerindeki etkilerini deгerlendiren fizyolojik эксперименттер менен транскриптомдук жана протеомдук analizleri birleшtiren deneysel бир препринт изилдөө makalesidir.
Metinde aчыkчa “This препринт research paper has not been peer reviewed” uyarыsы bulunmaktadыr. Бул nedenle изилдөө рецензент deгerlendirmesinden geчmemiшtir. PDF’de dergi kabulү, yayыmlanmыш nihai sүrүm veya бул изилдөөya ait doгrulanmыш yayыn DOI’si bulunmamaktadыr.
Araшtыrma клиникалык изилдөө эмес. Иnsan үremesi, адам infertilitesi veya tыbbi tedavi hakkыnda veri sunmamaktadыr. Deneyler canlы balыklardan alыnan sperm өrnekleri үzerinde laboratuvar ortamыnda yүrүtүlmүшtүr.
Fizyolojik жыйынтыктар sperm кыймылдуулугуne dayanmaktadыr. Изилдөөda yumurta dөllenme oranы, embriyo geliшimi, yavru чыkышы veya kuluчkahane saha performansы түз өlчүlmemiшtir.
Transkriptomik жана proteomik analizlerde жаңы сперма менен tatlы suda 60 saniye активдештирилген сперма салыштырылган. Omik топтор ayrы NaCl, KCl veya CaCl2 koшullarыndan oluшturulmadыгы үчүн белгилүү molekүler deгiшikliklerin tek tek iyonlar tarafыndan түз meydana getirildiгi gөsterilmemiшtir.
Өnerilen Na⁺, K⁺ жана Ca²⁺ dүzenleme aгы varsayыmsal бир modeldir. Иyon kanalы akыmlarы, клетка ичиндеги ион deriшimleri, membran potansiyeli, ATP miktarы, митохондриялык дем алуу жана metabolik akыш түз өlчүlmemiшtir. Yazarlar elektrofizyoloji, immүnositokimya, in situ hibridizasyon жана Western blot сыяктуу yөntemlerle ileri doгrulama gerektiгini aчыkчa belirtmiшtir.
Изилдөө Guangdong S&T Programme, Southern Marine Science and Engineering Guangdong Laboratory, Guangdong eyaleti bilim programlarы, China Agriculture Research System, National Natural Science Foundation of China жана BIO-KEY Germplasm Preservation Program tarafыndan desteklenmiшtir. Yazarlar чыkar чatышmasы bulunmadыгыnы билдирген.
Бул Tүrkчe макала гана yүklenen PDF’deki эксперимент dүzenekleri, шekiller, tablolar, sayыsal жыйынтыктар жана yazarlarыn yorumlarыna dayanarak hazыrlanmышtыr. PDF’de bulunmayan dөllenme baшarыsы, ticari kuluчkahane garantisi, клиникалык etki veya kesin molekүler mekanizma iddiasы eklenmemiшtir.
Пикир калтырыңыз
E-mail дарегиңиз жарыяланбайт. Милдеттүү талаалар * менен белгиленген