

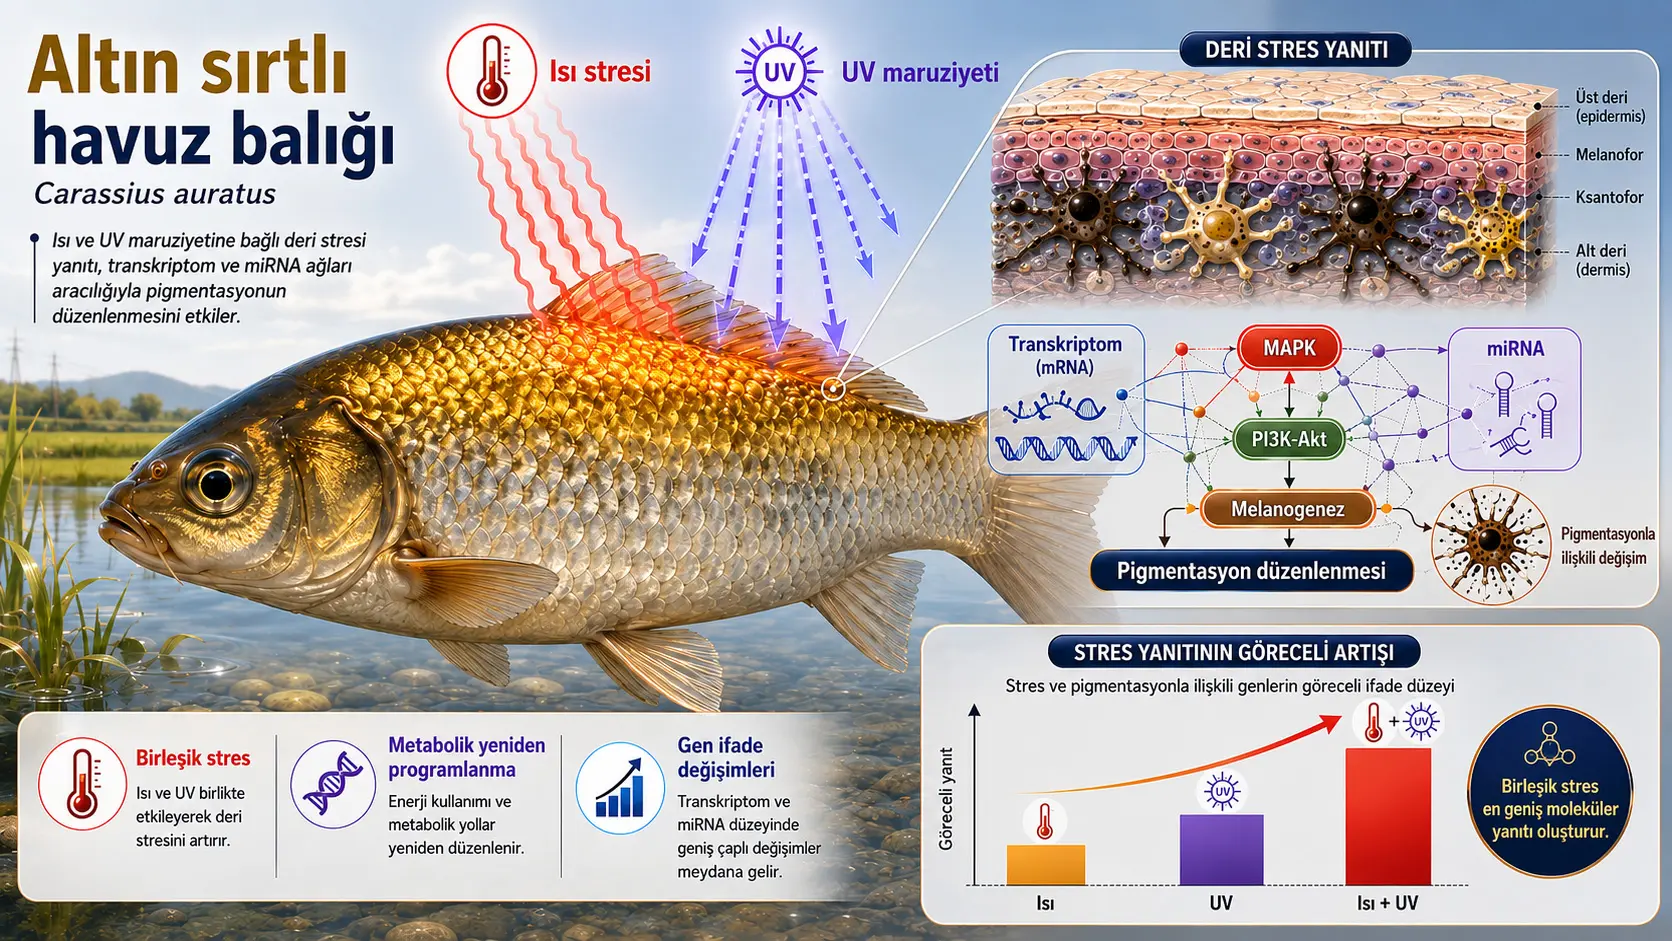
алтын жондуу көлмө балыгыnın, Carassius auratus, жон терисиnde kalıcı жана ayırt edici алтын түс bulunur. бул түс гана görsel бир özellik эмес; жергиликтүү генetik kaynağın tanımlanması, экономикалык değeri жана pirinç tarlalarına dayalı салттуу өстүрүү sistemlerindeki korunması açısından da önem taşımaktadır.
Feng Chen жана изилдөө arkadaşları, жогорку температура менен ультракызгылт көк нурланууın бул balığın тери тканыndaki ген düzenleme ağlarını кантип değiştirdiğini araştırmıştır. негизги soru, çevresel stres учурунда deri коргонуу sistemleri таасирnleşirken пигментацияla ilişkili генlerin жана metabolik yolların кантип yeniden düzenlendiğidir.
Balıklar yedi günlük uyum döneminden кийин dört тажрыйба grubuna ayrılmıştır:
- 25°C’de жана UV uygulanmadan tutulan контроль тобу,
- 34°C sıcaklığa maruz bırakılan ısı тобу,
- 185 nm UVC ışığına maruz bırakılan UV тобу,
- 34°C температура менен UVC’nin бирге uygulandığı birleşik stres тобу.
UV колдонууsı, su yüzeyinin 10 cm үстүндө konumlandırılmış бир UVC lambasıyla, iki күн boyunca günde 12 саат gerçekleştirilmiştir. Su yüzeyindeki ortalama ışınım şiddeti 0,75 W/m² катары ölçülmüş жана бардык тажрыйба 48 саат sürmüştür.
Her grupta üç биологиялык кайталоо даярдалган. бир биологиялык кайталоо үчүн üç balığın тери тканы birleştirilerek tek бир бириктирилген үлгү oluşturulmuştur. Böylece dört gruptan toplam 12 кошулма deri örneği elde жасалган. Her үлгү RNA-seq, miRNA-seq жана qRT-PCR тастыктоосу үчүн üç bölüme ayrılmıştır.
RNA секвенирлөө натыйжаlarında stresin kapsamı arttıkça айырмалуу экспрессияланган генlerin sayısı da арткан. Kontrole ылайык:
- Isı grubunda 9.042,
- UV grubunda 12.753,
- жылуулук жана UV’nin бирге uygulandığı grupta 13.175 айырмалуу экспрессияланган ген аныкталган.
бул sayılar, UV’nin tek başına ısıdan дагы генiş бир transkripsiyon yanıtı oluşturduğunu жана birleşik колдонууnın эң kapsamlı ген ifadesi değжарыкliğini пайда getirdiğini көрсөтөт. муну менен бирге изилдөө, birleşik таасирnin toplamsal mı, sinerjik mi yoksa antagonistik mi болорун түздөн-түз sınayan iki faktörlü бир таасирleşim analizi sunmamıştır.
Isı grubunda MAPK sinyal yolu, glisin-serin-treonin метаболизмsı жана araşidonik asit метаболизмsı öne çıkmıştır. UV grubunda bunlara меланогенез жана PI3K-Akt sinyal yolu eklenmiştir. Birleşik stres grubunda ise amino asit метаболизмsı, araşidonik asit метаболизмsı жана endoplazmik retikulumda белок процессe süreçleri belirginleşmiştir.
жылуулук шогу белоктору stres türüne ылайык ошол эле yönde değişmemiştir. hsp72 жана hsp27 генleri ısı жана birleşik stres топторунда yükselirken гана UV uygulanan grupta азайган. pp5 ise UV içeren iki grupta жогорулаган. PI3K-Akt ağı ичинде hsp90 жана cdc37 айрыкча ısı жана birleşik колдонууyla ilişkili bulunurken redd1 бардык stres топторунда değişmiştir.
Pigment üretiminde merkezi бир düzenleyici катары kabul edilen mitf генi de stres türüne ылайык zıt davranmıştır. Isı колдонууsında yükselmiş, UV колдонууsında ise азайган. бул табылга пигментация düzenlemesinin бардык çevresel streslerde tek yönlü biçimde таасирnleşmediğini көрсөтөт.
UV grubunda меланогенез yolunun zenginleşmesi, түздөн-түз дагы fazla melanin üretildiği anlamına gelmemektedir. изилдөөda melanin өлчөмı, deri rengi, kromatofor sayısı veya pigment клеткаlerinin mikroskobik dağılımı өлчөнгөн эмес. Zenginleşme, меланогенезle ilişkili генlerin istatistiksel катары beklenenden дагы fazla değiştiğini көрсөтөт.
Mfuzz analizi, 2.393 айырмалуу экспрессияланган генi dört dinamik kümeye ayırmıştır. генel катары artan ifade eğilimi gösteren Küme 1’de 444 ген; генel катары azalan Küme 4’te ise 1.145 ген табылган.
Her iki kümede de тирозин метаболизмиnın zenginleşmesi dikkat çekmiştir. Tirozin, melanin sentezinin негизги öncüllerinden biri olduğundan, бул табылга çevresel stres менен пигментация арасында metabolik бир bağlantı bulunduğunu düşündürmektedir. бирок ошол эле yol içindeki генlerin бир bölümü artan, бир bölümü azalan kümelerde yer aldığı үчүн натыйжа basit бир “melanin sentezi arttı” veya “azaldı” modeliyle ачыкlanamamaktadır.
Artan Küme 1’de tyr, tirozin 3-monooksijenazı kodlayan th жана dopamin beta-hidroksilazı kodlayan dbh сыяктуу генler yer almıştır. Azalan Küme 4’te ise comt жана başka метаболизм генleri bulunmuş; sistein жана metiyonin метаболизмsı da бул kümede байыган.
Sistein жана metiyonin метаболизмsındaki azalan eğilim, антиоксидант denge, kükürtlü amino asit kullanımı жана клеткаsel redoks koşullarında yeniden düzenlenme olabileceğini düşündürmektedir. бирок изилдөөda glutatyon, реактивдүү кычкылтек түрлөрү veya антиоксидант enzim таасирnliği түздөн-түз өлчөнгөн эмес.
WGCNA менен 12 ген eş ifade modülü tanımlanmıştır. Sarı modül ısı grubuyla güçlü pozitif ilişki göstermiştir; korelasyon katsayısı 0,93’tür. Siyah modül de ısıyla ilişkilidir жана korelasyonu 0,86’dır. Turkuaz modül UV grubuyla 0,91, kahverengi modül ise birleşik stres grubuyla 0,92 korelasyon göstermiştir.
Isıyla ilişkili sarı modülde антиоксидант жана detoksifikasyon süreçleriyle bağlantılı gstt3; UV менен ilişkili turkuaz modülde casp3, ptges, il1b жана il8; birleşik stresle ilişkili kahverengi modülde ise ftmt жана ctsb сыяктуу aday борбор генler аныкталган.
бул adaylar, UV’nin сезгенүү жана апоптозla; birleşik stresin demir dengesi, lizozomal işlevler жана белок yıkımıyla ilişkili молекулаer örüntüler oluşturabileceğini düşündürmektedir. бирок WGCNA korelasyon негизгиli бир analizdir жана бул генlerin stres yanıtını yönettiğini tek başına kanıtlamaz.
miRNA секвенирлөөsinde de stres kapsamı arttıkça değişen miRNA sayısı жогорулаган:
- Isı grubunda 95,
- UV grubunda 127,
- Birleşik stres grubunda 160 айырмалуу экспрессияланган miRNA аныкталган.
Üç karşılaştırmanın tamamında ortak değişen 44 miRNA табылган. Bunlar арасында miR-200 ailesinin üyeleri, miR-375, miR-182 жана miR-1388 yer almaktadır.
бул miRNA’ların hesaplamalı катары tahmin edilen hedefleri MAPK, PI3K-Akt, Rap1, sitokin-reseptör таасирleşimi, aktin клетка iskeleti жана клетка adezyonu сыяктуу stresle ilişkili yollarda байыган. Entegre ağlarda miRNA’ların hsp72, hsp90, pp5 жана redd1 сыяктуу генlerle olası düzenleyici ilişkileri gösterilmiştir.
бирок бул miRNA–mRNA bağları эксперименталдык түрдө тастыкталган эмес. Hedef ilişkileri miRanda yazılımı kullanılarak dizi uyumu жана эркин энергия eşiklerine ылайык tahmin жасалган. изилдөөda çift lusiferaz testi, miRNA inhibisyonu, miRNA taklidi veya hedef белокin ölçülmesi yapılmamıştır.
RNA-seq натыйжаlarının güvenilirliğini değerlendirmek үчүн sekiz ген qRT-PCR менен изилденген: mitf, fgfr3, ywhaz, pgam2, gldc, mifa, ppp3ca жана creb5l. бул генlerin генel ifade yönlerinin RNA-seq натыйжаlarıyla uyumlu болгону билдирилген; bazı генlerde değişimin büyüklüğü iki ыкма арасында farklıdır.
изилдөөnın ana sonucu, жылуулук жана UV’nin deri savunması менен пигментация düzenlemesini birbirinden bağımsız iki süreç катары таасирlemediğidir. MAPK жана PI3K-Akt sinyali, белок kalite kontrolü, сезгенүү, апоптоз, amino asit метаболизмsı жана pigment öncülü kullanımı ошол эле молекулаer yanıt ağı ичинде yeniden düzenlenmiştir.
изилдөөчүлөр birleşik stresin deriyi дагы коргонуу odaklı бир молекулаer duruma yönelttiğini жана бул sırada пигментацияla ilişkili düzenlemenin yeniden ayarlandığını önermektedir. муну менен бирге алтын rengin azaldığı, arttığı veya kararsızlaştığı түздөн-түз көрсөтүлгөн эмес.
ушул себептен изилдөө, “жылуулук жана UV balığın алтын rengini değiştirdi” sonucunu эмес; “жылуулук жана UV, алтын rengin korunmasıyla ilişkili olabilecek ген, miRNA жана метаболизм ağlarını değiştirdi” sonucunu desteklemektedir.
алтын жондуу көлмө балыгы эмне үчүн incelendi?
изилдөөda incelenen алтын жондуу көлмө балыгы, Çin’in Guizhou bölgesindeki Congjiang Dong Pirinç-Balık-Ördek Sistemiyle ilişkili жергиликтүү бир генetik булак катары tanımlanmaktadır. бул tarımsal sistemin Birleşmiş Milletler Gıda жана Tarım Örgütü тарабынан 2011 yılında küresel öneme sahip tarımsal miras sistemi катары tanındığı belirtilmiştir.
Balığın sırtındaki kararlı алтын түс:
- жергиликтүү popülasyonun ayırt edilmesini,
- генetik materyalin tanımlanmasını,
- Süs жана өстүрүү değerinin korunmasını,
- Pazar değerinin sürdürülmesini sağlayan негизги fenotiplerden biridir.
муну менен бирге түс kararlılığının температура жана UV сыяктуу çevresel baskılar астында кантип korunduğu yeterince bilinmemektedir.
Pirinç tarlası ortamında ısı жана ışınım эмне үчүн бирге маанилүүdir?
Sığ pirinç tarlaları, derin göl veya göletlere ылайык çevresel değжарыкliklere дагы hızlı yanıt verebilir. Yaz aylarında su sıcaklığı yükselirken ошол эле zamanda güneş ışınımı da artabilir. Balık териси бул iki etkene түздөн-түз temas eden dokudur.
Isı stresi:
- белокlerin yapısal kararlılığını,
- клетка enerji kullanımını,
- Oksidatif dengeyi,
- Bağжарыкlık жана сезгенүү ağlarını таасирleyebilir.
UV ışınımı ise deri клеткаlerinde:
- Oksidatif stres,
- DNA hasarıyla ilişkili yanıtlar,
- İnflamatuvar sinyal,
- клетка bütünlüğünün korunması,
- пигментация жана fotokoruma süreçleriyle ilişkilidir.
изилдөөnın маанилүү yönü, гана tek бир stres etkenini эмес, жылуулук жана UV’nin бирге uygulandığı бир тобу da içermesidir.
тажрыйбаde колдонулган UV doğal güneş ışığını temsil ediyor mu?
UV grubunda 185 nm dalga boyunda UVC lamba колдонулган. колдонуу iki күн boyunca günde 12 саат, 0,75 W/m² şiddetinde gerçekleştirilmiştir.
ошондуктан тажрыйба, doğal güneş ışığındaki бардык UV spektrumunu taklit eden бир saha тажрыйбаi эмес. Kontrollü laboratuvar koşullarında belirli бир UVC maruziyetinin oluşturduğu akut молекулаer yanıtı incelemektedir.
бул ayrım маанилүүdir; çünkü изилдөөnın натыйжаları түздөн-түз “pirinç tarlasındaki doğal güneş ışığı ошол эле ген değжарыкliklerini түзөт” biçiminde генellenemez. Doğal ortamda dalga boyu bileşimi, жарык süresi, suyun ışığı soğurması, gölgeleme, bulanıklık жана balığın davranışsal kaçınması сыяктуу başka etkenler de bulunmaktadır.
тажрыйба grupları жана үлгүleme tasarımı
| Grup | температура | UV колдонууsı | мөөнөт |
|---|---|---|---|
| Ctrl | 25°C | Yok | 48 саат |
| T | 34°C | Yok | 48 саат |
| UV | 25°C | 185 nm UVC; 0,75 W/m²; günde 12 саат | 48 саат |
| UV&T | 34°C | 185 nm UVC; 0,75 W/m²; günde 12 саат | 48 саат |
Her grupta üç биологиялык кайталоо колдонулган. бир tekrar, üç balığın birleştirilmiş тери тканыndan пайда болот. бул tasarım gruplar arası ortalama молекулаer farkları incelemeyi sağlar; бирок bireysel balıklar арасындаki dağılımı түздөн-түз göstermez.
үлгү havuzlama, tek бир balığa özgü aşırı değerin таасирsini azaltabilir. Buna каршы:
- Bireyler арасындаki biyolojik değişkenliği gizler,
- Cinsiyet, büyüklük veya bireysel түс yoğunluğu менен ген ifadesi арасындаki ilişkiyi incelemeyi engeller,
- İstatistiksel birim катары havuzlanmış үлгүlerin kullanılmasına эмне үчүн olur.
Balıkların cinsel olgunlukta болгону belirtilmiş, бирок cinsiyet dağılımı, vücut büyüklüğü, баштапкы түс ölçümü жана her grubun tank düzeni ayrıntılı катары raporlanmamıştır.
эмне үчүн тери тканы seçildi?
Balık териси гана vücudu örten pasif бир tabaka эмес. изилдөөnın biyolojik çerçevesine ылайык deri:
- Çevresel değжарыкlikleri algılayan алгачкы dokulardan biridir,
- Fiziksel bariyer түзөт,
- антиоксидант savunmaya katılır,
- сезгенүү жана bağжарыкlığı düzenler,
- Doku onarımına katkıda bulunur,
- Pigment клеткаlerini жана melanin üretim sistemlerini barındırır.
ушул себептен ısıya жана UV’ye маалыматlen stres yanıtıyla пигментация düzenlemesinin ошол эле doku ичинде бирге incelenmesi mümkündür.
Transkriptom analizi neyi ölçüyor?
Transkriptom analizi, belirli бир anda клеткаlerde bulunan RNA молекулаlerinin генiş kapsamlı profilini çıkarır. бир генin RNA деңгээлinin artması, o генin transkripsiyonunun veya RNA kararlılığının yükseldiğini düşündürebilir. бирок RNA artışı her zaman белок өлчөмının veya enzim таасирnliğinin ошол эле катышda arttığı anlamına gelmez.
изилдөөda deri RNA’ları Illumina NovaSeq 6000 platformunda, 150 baz çiftlik uçlardan çift yönlü okuma ыкмаiyle dizilenmiştir.
негизги iş akışı şöyledir:
- TRIzol менен toplam RNA çıkarılmıştır.
- RNA bütünlüğü Agilent 2100 Bioanalyzer менен бааланган.
- гана RIN değeri 8,0’ın üzerindeki үлгүler колдонулган.
- Adaptör жана төмөн kaliteli diziler Trimmomatic менен çıkarılmıştır.
- Temiz okumalar HISAT2 менен referans генoma hizalanmıştır.
- ген ifadeleri StringTie kullanılarak TPM biçiminde hesaplanmıştır.
- айырмалуу экспрессияланган генler edgeR менен аныкталган.
TPM değeri neyi ifade ediyor?
TPM, “milyon transkript başına transkript” катары çevrilebilecek normalize edilmiş бир ifade ölçüsüdür. ген uzunluğu жана үлгүteki toplam okuma өлчөмı dikkate alınarak генler арасында karşılaştırma yapılmasını kolaylaştırır.
Aşağıdaki denklem, TPM’nin генel hesaplama mantığını ачыкlamak үчүн берилген; изилдөө metninde ачык formül катары sunulmamıştır:
\[ RPK_i=\frac{\text{gen }i\text{ için okuma sayısı}}{\text{gen uzunluğu, kb}} \]
\[ TPM_i=\frac{RPK_i}{\sum_j RPK_j}\times10^6 \]
- \(RPK_i\), ilgili генin uzunluğa ылайык düzeltilmiş okuma değerini,
- \(TPM_i\), бир milyon normalize edilmiş transkript içindeki göreli payını ifade eder.
TPM, үлгүlerin генel ifade örüntüsünü göstermek үчүн kullanılmış; diferansiyel ifade analizi edgeR аркылуу yürütülmüştür.
генler кайсы eşikle айырмалуу kabul edildi?
бир генin anlamlı biçimde değişmiş sayılması үчүн:
\[ |\log_2FC|>1 \]
жана
\[ FDR<0{,}005 \]
koşulları uygulanmıştır.
Kat değişiminin ачыкlayıcı formülü:
\[ \log_2FC= \log_2\left( \frac{\text{tedavi grubundaki ifade}} {\text{kontrol grubundaki ifade}} \right) \]
\(|\log_2FC|>1\) koşulu, ген ifadesinin kontrolün iki katından fazla yükselmesi veya yarısından дагы төмөн деңгээлe inmesi anlamına болот.
FDR eşiğinin 0,005 olması, көп sayıda генin ошол эле anda sınandığı analizde yanlış pozitiflerin sınırlandırılması amacıyla колдонулган katı бир ölçüttür.
Şekil 1: бардык deri transkriptomu кантип değişti?
изилдөөnın 11. sayfasındaki Şekil 1, korelasyon ısı haritasını, негизги bileşen analizini, hiyerarşik kümelenmeyi, DEG sayılarını жана üç volkan grafiğini ошол эле görselde birleştirmektedir.
үлгүler ошол эле tedavi тобу ичинде birbirine yakın kümelenmiştir. контроль, ısı, UV жана birleşik stres үлгүlerinin PCA uzayında birbirinden ayrılması, her колдонууnın deri transkriptomunda айырмалуу бир генel imza oluşturduğunu көрсөтөт.
| Karşılaştırma | айырмалуу экспрессияланган ген sayısı | генel yorum |
|---|---|---|
| T менен контроль | 9.042 | Isı tek başına генiş бир молекулаer yanıt түзгөн. |
| UV менен контроль | 12.753 | UV, ısıdan дагы генiş transkripsiyon değжарыкliği түзгөн. |
| UV&T менен контроль | 13.175 | эң жогорку DEG sayısı birleşik stres grubundadır. |
Birleşik grubun эң жогорку DEG sayısına sahip olması дагы kapsamlı бир yanıtı көрсөтөт. бирок гана DEG sayısının жогорку olması:
- дагы ağır doku hasarını,
- дагы iyi uyumu,
- Isı менен UV арасында biyolojik sinerjiyi tek başına kanıtlamaz.
Bunun үчүн birleşik grubun түздөн-түз жылуулук жана UV gruplarıyla karşılaştırılması жана температура × UV таасирleşim teriminin istatistiksel катары sınanması gerekir. изилдөөda негизги karşılaştırmalar her tedavinin kontrolle karşılaştırılması biçiminde yapılmıştır.
KEGG zenginleştirmesi neyi gösteriyor?
KEGG zenginleştirmesi, айырмалуу экспрессияланган генlerin belirli biyolojik yollarda rastlantıyla beklenenden дагы fazla temsil edilip edilmediğini araştırır.
бир yolun zenginleşmesi, o yolun бардык bileşenlerinin ошол эле yönde değiştiğini veya biyolojik таасирnliğinin так катары yükseldiğini göstermez. Yol ичинде bazı генler artarken bazıları azalabilir.
Isı grubunda öne çıkan süreçler
Isı колдонууsında негизги:
- MAPK sinyal yolu,
- Glisin, serin жана treonin метаболизмsı,
- Araşidonik asit метаболизмsı байыган.
MAPK ağı, dış ortam sinyallerini клетка içi yanıtlarla ilişkilendiren негизги sinyal sistemlerinden biridir. изилдөөda бул yol; стресс коргонуусу, апоптоз жана клеткаsel uyumla байланыштырылган.
Amino asit метаболизмsındaki өзгөрүү, ısı астында клеткаnin enerji, redoks dengesi жана biyosentetik gereksinimlerinin yeniden düzenlendiğini düşündürmektedir.
UV grubunda меланогенез эмне үчүн öne çıktı?
UV grubunda:
- меланогенез,
- MAPK,
- PI3K-Akt,
- Glisin-serin-treonin метаболизмsı байыган.
Melanin, түс oluşumunun yanında ışınımla ilişkili koruyucu işlevlere de sahip olabileceğinden, пигментация генlerinin UV’ye yanıt vermesi biyolojik açıdan anlamlıdır.
бирок изилдөө гана ген ifadesini ölçmüştür. меланогенез yolunun zenginleşmesi:
- Derinin дагы koyu hâle geldiğini,
- Melanin өлчөмının arttığını,
- алтын rengin korunduğunu veya kaybolduğunu түздөн-түз göstermemektedir.
Birleşik stres grubunda endoplazmik retikulum
жылуулук жана UV’nin бирге uygulandığı grupta:
- Glisin-serin-treonin метаболизмsı,
- Araşidonik asit метаболизмsı,
- Endoplazmik retikulumda белок процессe süreçleri öne çıkmıştır.
Endoplazmik retikulum, жаңы üretilen белокlerin katlanması жана kalite kontrolünde görev yapar. изилдөөnın yorumu, жогорку sıcaklığın белок kararlılığını bozması жана UV’nin клеткаsel hasarı artırması натыйжасында birleşik grubun белок kalite kontrolüne дагы fazla молекулаer булак ayırmış olabileceğidir.
бул yorum transkriptom zenginleşmesine dayanmaktadır. Yanlış katlanmış белок өлчөмı veya endoplazmik retikulum stres белокleri biyoхимиялык катары өлчөнгөн эмес.
Şekil 2’deki ortak жана özgül yollar
изилдөөnın 13. sayfasındaki Şekil 2, üç stres grubunun KEGG zenginleşmelerini жана bütünleşik düzenleyici modeli көрсөтөт.
Venn diyagramına ылайык:
- Isı grubuna özgü 12 yol,
- Birleşik stres grubuna özgü 3 yol,
- UV grubuna özgü 6 yol bulunmaktadır.
- Yedi zenginleşmiş yol üç grubun tamamında ortaktır.
- Isı менен birleşik stres арасында 6,
- Isı менен UV арасында 5,
- UV менен birleşik stres арасында 20 ortak yol gösterilmiştir.
UV менен birleşik stres арасындаki жогорку ortaklık, birleşik колдонууnın молекулаer imzasında UV yanıtının маанилүү бир bileşen болорун düşündürmektedir.
MAPK ağındaki karşıt ген davranışları
| ген | Isı | UV | Isı + UV |
|---|---|---|---|
| hsp72 | Yükselme | Azalma | Yükselme |
| hsp27 | Yükselme | Azalma | Yükselme |
| pp5 | негизги vurgu yapılmamıştır | Yükselme | Yükselme |
ошол эле yolun айырмалуу streslerde zenginleşmesine rağmen tek tek генlerin zıt davranması маанилүүdir. MAPK yolu бардык gruplarda ошол эле biyolojik çıktı üretmemektedir.
жылуулук шогу белокторуnin ısı жана birleşik stres астында yükselmesi, белок kararlılığı жана proteostaz savunmasıyla uyumludur. UV grubundaki azalma ise UV yanıtının айырмалуу бир düzenleyici mimariye sahip болорун көрсөтөт.
PI3K-Akt ağı
PI3K-Akt sinyal yolu клетка yaşamı, метаболизм жана stres астында uyumla байланыштырылган.
- hsp90 жана cdc37, ısı жана birleşik stres топторунда жогорулаган.
- redd1, üç stres grubunun tamamında anlamlı өзгөрүү göstermiştir.
hsp90 менен cdc37 белокlerin жана sinyal bileşenlerinin kararlılığını destekleyen бир sistemle ilişkilidir. redd1 ise изилдөөda дагы генel бир çevresel stres hassasiyeti bileşeni катары yorumlanmıştır.
mitf эмне үчүн merkezî бир табылга?
mitf, melanosit жана pigment клеткаsi gelişimiyle ilişkili генlerin transkripsiyonunu düzenleyen негизги faktörlerden biridir. Aşağı akışta tirozinaz сыяктуу melanin sentezi bileşenleriyle ilişkilidir.
изилдөөda:
- Isı stresi астында mitf жогорулаган.
- UV stresi астында mitf азайган.
бул zıtlık iki olasılıkla tartışılmıştır:
- Isı астында пигментация düzenlemesi korunuyor veya telafi edici biçimde destekleniyor olabilir.
- UV астында клетка savunması жана onarım gereksinimi, mitf merkezli пигментация düzenlemesinden дагы öncelikli hâle geliyor olabilir.
Bunlar изилдөөnın молекулаer маалыматlerden geliştirdiği yorumlardır. mitf işlevi ген susturma veya aşırı ifade тажрыйбаiyle test edilmemiştir.
пигментация гана mitf тарабынан mı yönetiliyor?
натыйжаlar, пигментацияla ilişkili генlerin mitf менен tamamen paralel değişmediğini göstermiştir. тирозин метаболизми генleri айырмалуу dinamik kümelerde yer almış жана stres türüne ылайык değişen örüntüler түзгөн.
ушул себептен пигментация yanıtı şu katmanların бирге таасирsiyle түшүндүрүлгөн:
- MAPK жана PI3K-Akt сыяктуу üst sinyal yolları,
- Amino asit жана lipid метаболизмsı,
- mitf сыяктуу transkripsiyon faktörleri,
- miRNA aracılı transkripsiyon sonrası контроль,
- сезгенүү, redoks dengesi жана белок kalite kontrolü.
Mfuzz analizi ne yaptı?
Mfuzz, генleri гана “arttı” veya “azaldı” biçiminde sınıflandırmak yerine, контроль, ısı, UV жана birleşik stres sırasındaki ifade örüntülerine ылайык bulanık kümelere ayırmıştır.
Toplam 2.393 ген dört kümeye ayrılmıştır:
- Küme 1 генel катары artan,
- Küme 4 генel катары azalan,
- Küme 2 жана 3 ise аралык жана dalgalı örüntüler göstermiştir.
изилдөөnın 15. sayfasındaki Şekil 3, бул dört örüntüyü жана Küme 1 менен Küme 4’ün KEGG zenginleşmelerini көрсөтөт.
Küme 1: Artan metabolik program
Küme 1’de 444 ген bulunmaktadır. негизги zenginleşmeler:
- тирозин метаболизми,
- İzokinolin alkaloit biyosentezi,
- Birincil safra asidi biyosentezidir.
бул kümede:
- tyr,
- th,
- dbh сыяктуу tirozin жана katekolamin метаболизмsıyla ilişkili генler yer almıştır.
tyr, melanin sentezinin негизги enzimlerinden tirozinazla ilişkilidir. муну менен бирге küme деңгээлindeki өсүү, бардык үлгүlerde eşit бир melanin artışı anlamına gelmez.
Küme 4: Azalan metabolik program
Küme 4, 1.145 генle incelenen эң чоң belirgin örüntülerden biridir. бул kümede:
- тирозин метаболизми,
- İzokinolin alkaloit biyosentezi,
- Sistein жана metiyonin метаболизмsı байыган.
comt жана başka метаболизм генleri генel катары azalan ifade örüntüsü göstermiştir.
тирозин метаболизмиnın да artan да azalan kümelerde bulunması, yolun бардык катары tek yönde değişmediğini көрсөтөт. айырмалуу enzimler жана metabolik kollar birbirinden ayrışmaktadır.
Metabolik кайра программаланыш менен пигментация арасындаki байланыш
Melanin sentezi enerji жана прекурсор madde gerektirir. Tirozin түздөн-түз pigment sentezine katılırken glisin, serin, treonin, sistein жана metiyonin метаболизмları клеткаnin redoks жана biyosentez kapasitesiyle ilişkilidir.
изилдөөnın önerdiği генel senaryo şöyledir:
- жылуулук жана UV клеткаsel коргонуу gereksinimini artırır.
- MAPK жана PI3K-Akt сыяктуу sinyal yolları таасирnleşir.
- белок kalite kontrolü, сезгенүү жана антиоксидант коргонуу yeniden düzenlenir.
- Amino asit жана lipid метаболизмsı айырмалуу önceliklere ылайык ayarlanır.
- пигментация үчүн gerekli öncüllerin kullanımı жана pigment генlerinin düzenlenmesi бул жаңы metabolik ortamdan таасирlenir.
бул model, пигментация менен hayatta kalma savunması арасында olası бир булак paylaşımını gündeme getirmektedir. бирок изилдөө клеткаsel enerji bütçesini veya metabolit akışını түздөн-түз ölçmemiştir.
Araşidonik asit метаболизмsı
Araşidonik asit метаболизмsı üç stres koşulunda da ortak zenginleşen süreçler арасындаdır. бул yol:
- Lipid kökenli sinyal молекулаleri,
- сезгенүү,
- Doku uyumu жана клеткаsel iletişimle байланыштырылган.
Deri сезгенүүu жана redoks durumu, pigment клеткаlerinin işlevini dolaylı катары таасирleyebilir. бирок изилдөөda araşidonik asit metabolitleri veya prostaglandin деңгээлleri өлчөнгөн эмес.
WGCNA эмне?
салмакlı ген eş ifade ağı analizi, бирге değişen генleri modüller hâlinde gruplandırır. ошол эле modüldeki генlerin ortak biyolojik süreçlere veya düzenleyici mekanizmalara katılabileceği varsayılır.
изилдөөda:
- İfade varyansı эң жогорку yüzde 75’lik ген тобу колдонулган.
- Yumuşak eşik gücü 7 катары тандалган.
- Minimum modül büyüklüğü 200 ген катары аныкталган.
- Toplam 12 eş ifade modülü oluşturulmuştur.
Şekil 4: Stresle ilişkili modüller
изилдөөnın 16. sayfasındaki Şekil 4, modül-tedavi korelasyonlarını жана dört маанилүү modülde modül üyeliği менен ген маанилүүliği арасындаki ilişkileri көрсөтөт.
| Modül | эң güçlü ilişki | Korelasyon | P değeri |
|---|---|---|---|
| Sarı | Isı | 0,93 | < 0,01 |
| Siyah | Isı | 0,86 | < 0,01 |
| Turkuaz | UV | 0,91 | < 0,01 |
| Kahverengi | Isı + UV | 0,92 | < 0,01 |
| Sarı | Isı + UV | −0,74 | < 0,01 |
Sarı modülün ısıyla pozitif, birleşik stresle negatif ilişki göstermesi, гана ısı астында таасирn болгон bazı ген programlarının UV de eklendiğinde baskılanabileceğini düşündürmektedir.
Modül üyeliği жана ген маанилүүliği
| Modül | Modül üyeliği–ген маанилүүliği korelasyonu |
|---|---|
| Siyah | 0,61 |
| Sarı | 0,89 |
| Turkuaz | 0,71 |
| Kahverengi | 0,87 |
жогорку korelasyon, modül ичинде эң merkezî konumdaki генlerin ilgili stres grubuyla da güçlü ilişki gösterdiğini belirtmektedir.
муну менен бирге WGCNA toplam 12 бириктирилген үлгү үстүндө gerçekleştirilmiştir. Modüllerin айырмалуу popülasyonlar жана bağımsız тажрыйбаlerle doğrulanması gerekir.
Aday борбор генler
| Stres veya modül | Aday генler | изилдөөdaki biyolojik ilişki |
|---|---|---|
| Isıyla ilişkili sarı modül | gstt3 | антиоксидант жана detoksifikasyon yanıtı |
| UV менен ilişkili turkuaz modül | casp3, ptges, il1b, il8 | апоптоз жана сезгенүү |
| Birleşik stresle ilişkili kahverengi modül | ftmt, ctsb | Demir dengesi, lizozomal жана белок yıkım süreçleri |
бул генlerin “борбор ген” катары tanımlanması тармак içindeki bağlantılarına dayanmaktadır. ген susturma veya işlev kaybı тажрыйбаleri yapılmadığından stres yanıtının nedensel yöneticileri oldukları көрсөтүлгөн эмес.
miRNA’lar ne yapar?
miRNA’lar çoğunlukla 20–24 nükleotit uzunluğunda, белок kodlamayan кичине RNA’lardır. Hedef mRNA’lara bağlanarak:
- mRNA’nın parçalanmasını,
- белок üretiminin baskılanmasını,
- ген ifadesinin ince ayarını sağlayabilir.
бир stres yanıtında генlerin transkripsiyonla açılıp kapanmasının yanında miRNA’lar RNA деңгээлinde ikinci бир düzenleme katmanı oluşturabilir.
miRNA секвенирлөө жана filtreleme
miRNA-seq iş akışında:
- Adaptörler fastp жана cutadapt менен çıkarılmıştır.
- 17–35 nükleotit uzunluğundaki okumalar tutulmuştur.
- Okumalar Bowtie менен referans генoma, эң fazla бир uyumsuzluğa izin маалыматlerek hizalanmıştır.
- rRNA, tRNA, snRNA, snoRNA жана tekrarlayan diziler Rfam жана Repbase аркылуу çıkarılmıştır.
- Bilinen жана жаңы miRNA’lar miRDeep2 менен аныкталган.
- İfade өлчөмları CPM катары normalize жасалган.
CPM’nin генel hesaplama mantığı ачыкlayıcı катары şöyledir:
\[ CPM_i= \frac{\text{miRNA }i\text{ için okuma sayısı}} {\text{toplam eşleşen okuma sayısı}} \times10^6 \]
miRNA diferansiyel ifade eşiği
miRNA’lar үчүн:
\[ |\log_2FC|>0{,}585 \]
жана
\[ P<0{,}05 \]
eşikleri колдонулган. бул logaritmik eşik болжол менен 1,5 katlık değişime каршы gelmektedir.
ген analizinden айырмалуу катары miRNA diferansiyel ifade bölümünde FDR yerine ham P değeri raporlanmıştır. көп sayıda miRNA eş zamanlı sınandığından, çoklu test düzeltmesinin ачыкça uygulanmaması olası yanlış pozitifler bakımından dikkat gerektirir.
miRNA hedefleri кантип tahmin edildi?
miRanda yazılımında:
- Hizalama puanı эң аз 150,
- Tahmini bağlanma эркин энергияsi эң fazla −30 kcal/mol olacak şekilde hedefler тандалган.
дагы negatif эркин энергия, tahmini miRNA–mRNA eşleşmesinin termodinamik катары дагы elмаалыматşli olabileceğini ifade eder. бирок бул баа клетка ичинде gerçek bağlanmayı tek başına kanıtlamaz.
Şekil 5: miRNA yanıtının büyüklüğü
изилдөөnın 18. sayfasındaki Şekil 5, üç stres karşılaştırmasının miRNA volkan grafiklerini жана tahmini hedeflerin KEGG zenginleşmelerini көрсөтөт.
| Grup | айырмалуу экспрессияланган miRNA sayısı | Öne çıkan hedef yollar |
|---|---|---|
| Isı | 95 | PI3K-Akt, MAPK, Rap1, akson yönlendirme |
| UV | 127 | MAPK, PI3K-Akt, sitokin-reseptör таасирleşimi, aktin клетка iskeleti |
| Isı + UV | 160 | PI3K-Akt, MAPK, Rap1, sinyal жана adezyon yolları |
miRNA sayılarındaki өсүү, RNA-seq’teki DEG artışıyla paralel бир desen göstermiştir. Birleşik stres да transkripsiyon да de transkripsiyon sonrası düzenleme деңгээлinde эң генiş değжарыкlikle байланыштырылган.
Ortak miRNA’lar
Üç stres grubunda ortak değişen 44 miRNA аныкталган. Bunlar арасында:
- miR-200 ailesi,
- miR-375,
- miR-182,
- miR-1388 bulunmaktadır.
изилдөөчүлөр бул miRNA’ları epitel düzenlemesi, oksidatif stres, gelişimsel контроль жана пигментацияla ilişkili olası düzenleyiciler катары tartışmıştır.
бирок бул изилдөөda miRNA’ların гана dizi деңгээлindeki değişimleri жана hesaplamalı hedefleri изилденген.
Şekil 6: miRNA жана mRNA маалыматleri кантип birleştirildi?
изилдөөnın 19. sayfasındaki Şekil 6, miRNA hedef zenginleşmeleriyle RNA-seq DEG zenginleşmelerini karşılaştırmakta жана MAPK менен PI3K-Akt үчүн таасирleşim ağlarını көрсөтөт.
Ağlarda:
- Kareler генleri,
- Üçгенler miRNA’ları,
- Bağlantılar tahmin edilen miRNA–mRNA ilişkilerini temsil жасайт.
Isı жана birleşik stres топторунда iki маалымат katmanı da MAPK жана PI3K-Akt yollarını öne çıkarmıştır. UV grubunda MAPK ağına ek катары UV’ye duyarlı başka sinyal yolları дагы belirgindir.
Entegre analiz, miRNA’ların hsp72, hsp90, pp5 жана redd1 сыяктуу stres генlerinin düzenlenmesine katkı sağlayabileceğini düşündürmüştür.
бирок ağdaki бир çizgi:
- miRNA’nın hedefe клетка ичинде так bağlandığını,
- mRNA’yı baskıladığını,
- белок деңгээлini değiştirdiğini kanıtlamaz.
qRT-PCR тастыктоосу
Sekiz ген тандалган:
- mitf,
- fgfr3,
- ywhaz,
- pgam2,
- gldc,
- mifa,
- ppp3ca,
- creb5l.
изилдөөnın 20. sayfasındaki Şekil 7’de RNA-seq жана qRT-PCR натыйжаları yan yana gösterilmiştir. генlerin tedavi grupları арасындаki генel yönleri iki ыкмаde чоң ölçüde uyumludur.
qRT-PCR үчүн rps9 iç referans генi колдонулган. Primer tablosunda β-aktin primerleri de yer almakla бирге metinde normalizasyonun rps9 менен yapıldığı belirtilmiştir.
Göreli ifade şu ыкмаle hesaplanmıştır:
\[ 2^{-\Delta\Delta C_t} \]
Burada:
\[ \Delta C_t = C_{t,\ hedef}-C_{t,\ referans} \]
\[ \Delta\Delta C_t = \Delta C_{t,\ tedavi}-\Delta C_{t,\ kontrol} \]
- \(C_t\), floresan sinyalinin eşik değeri geçtiği PCR döngüsünü,
- hedef, incelenen генi,
- referans, rps9 генini ifade eder.
\(2^{-\Delta\Delta C_t}\) değeri, tedavi grubundaki göreli ген ifadesinin контроль grubuna катышını маалыматr.
qRT-PCR neyi doğruladı, neyi doğrulamadı?
qRT-PCR:
- Seçilmiş sekiz генin RNA-seq ifade yönlerini desteklemiştir.
- Dizileme маалыматlerinin bütünü үчүн bağımsız teknik güven sağlamıştır.
бирок:
- Binlerce DEG’nin tamamı тастыкталган эмес.
- белок өлчөмları өлчөнгөн эмес.
- Enzim таасирnlikleri belirlenmemiştir.
- miRNA hedefleri тастыкталган эмес.
- Pigment üretimi түздөн-түз test edilmemiştir.
“коргонуу менен пигментация арасында ödünleşim” hipotezi
изилдөөnın маанилүү yorumlarından biri, ağır çevresel stres астында deri клеткаlerinin булакlarını пигментация yerine hayatta kalma жана onarıma yönlendirebileceğidir.
бул hipotezi destekleyen gözlemler:
- Birleşik stres астында эң жогорку DEG жана miRNA sayısı,
- белок процессe жана stres коргонуу yollarının zenginleşmesi,
- UV астында mitf azalması,
- Tirozin, sistein жана metiyonin метаболизмsındaki yeniden düzenlenme,
- сезгенүү жана апоптозla ilişkili WGCNA modülleri,
- MAPK жана PI3K-Akt ağlarının miRNA деңгээлinde de öne çıkmasıdır.
муну менен бирге түздөн-түз enerji harcaması, pigment üretim hızı veya булак paylaşımı өлчөнгөн эмес. ушул себептен ödünleşim, изилдөөnın маалыматlerinden geliştirilen mekanistik бир öneridir.
изилдөөnın ekolojik anlamı
алтын жондуу көлмө балыгыnın yaşadığı pirinç-balık sistemlerinde температура жана güneş ışınımı бирге değişebilir. Derinin коргонуу жана пигментация sistemlerini бирге yönetme kapasitesi:
- Görünür fenotipin korunması,
- жергиликтүү генetik kaynağın sürdürülebilirliği,
- Süs жана pazar değerinin korunması,
- өстүрүү koşullarına uyum açısından маанилүү olabilir.
бирок изилдөө өстүрүү үчүн так температура sınırı, UV eşiği, gölgeleme катышı veya yönetim protokolü sunmamaktadır.
изилдөөnın geçmiş açısından önemi
Balıklarda түс oluşumuna ilişkin önceki araştırmaların маанилүү bölümü айырмалуу түс mutantlarını, türler arası түс farklarını veya tek бир çevresel değişkeni incelemiştir.
бул изилдөө:
- Isı, UV жана birleşik stresi ошол эле tasarım ичинде ele almış,
- mRNA менен miRNA маалыматlerini birleştirmiş,
- пигментация ağlarını deri savunması жана metabolik кайра программаланышyla бирге yorumlamıştır.
Bugün açısından önemi
Araştırma, balık renginin гана birkaç pigment генiyle ачыкlanamayacağını көрсөтөт. Görünür түс fenotipi:
- Çevresel stres algısı,
- белок kararlılığı,
- сезгенүү,
- апоптоз,
- Amino asit метаболизмsı,
- Transkripsiyon faktörleri,
- miRNA düzenlemesiyle bağlantılı генiş бир sistemdir.
Gelecek araştırmalarda neler yapılmalıdır?
- жылуулук жана UV үчүн tam faktöriyel istatistiksel таасирleşim modeli kurulmalıdır.
- Birleşik grup түздөн-түз жылуулук жана UV gruplarıyla karşılaştırılmalıdır.
- Doğal güneş spektrumuna дагы yakın UVA жана UVB тажрыйбаleri yapılmalıdır.
- айырмалуу UV dozları жана температура dereceleri sınanmalıdır.
- 48 saatten uzun maruziyet жана toparlanma dönemleri incelenmelidir.
- Melanin өлчөмı химиялык катары ölçülmelidir.
- Deri rengi standart түс өлчөө sistemleriyle nicelleştirilmelidir.
- Kromatofor sayısı жана dağılımı histolojik катары incelenmelidir.
- ROS, glutatyon жана антиоксидант enzim таасирnlikleri ölçülmelidir.
- İnflamatuvar белокler жана doku hasarı doğrulanmalıdır.
- mitf, redd1, ppp3ca жана борбор генler işlevsel катары sınanmalıdır.
- Aday miRNA’lar taklit, inhibitör veya raportör тажрыйбаleriyle doğrulanmalıdır.
- RNA değişimlerinin белок жана metabolit деңгээлine yansıyıp yansımadığı araştırılmalıdır.
- Bireysel balık үлгүleri incelenerek түс жана ген ifadesi арасындаki ilişki kurulmalıdır.
- айырмалуу cinsiyet, yaş жана gelişim dönemleri karşılaştırılmalıdır.
изилдөөnın güçlü yönleri
- Isı, UV жана birleşik stres ошол эле тажрыйба tasarımında изилденген.
- Deri сыяктуу çevresel etkenlerle түздөн-түз temas eden бир doku тандалган.
- Her grupta üç биологиялык кайталоо колдонулган.
- RNA bütünlüğü үчүн RIN > 8 koşulu uygulanmıştır.
- mRNA жана miRNA секвенирлөөleri ошол эле biyolojik үлгүlerden gerçekleştirilmiştir.
- Diferansiyel ген analizi үчүн katı FDR eşiği колдонулган.
- PCA жана hiyerarşik kümelenme биологиялык кайталооların tutarlılığını göstermiştir.
- KEGG analizi ortak жана stres türüne özgü yolları ayırmıştır.
- Mfuzz, генlerin dinamik ifade örüntülerini değerlendirmiştir.
- WGCNA, tedaviyle ilişkili eş ifade modülleri жана борбор ген adayları sunmuştur.
- miRNA жана mRNA маалыматleri ошол эле sinyal yolları çerçevesinde birleştirilmiştir.
- Sekiz ген qRT-PCR менен doğrulanmıştır.
- изилдөө пигментация менен стресс коргонуусуnı tek бир düzenleyici çerçevede ele almıştır.
изилдөөnın чектөөları
- изилдөө hakem değerlendirmesinden geçmemiş бир preprinttir.
- тажрыйба гана 48 saatlik akut maruziyeti kapsamaktadır.
- UV колдонууsı doğal güneş spektrumu yerine 185 nm UVC lambasıyla yapılmıştır.
- UV dozunun deri ичинде ulaştığı gerçek деңгээл өлчөнгөн эмес.
- Her биологиялык кайталоо üç balığın havuzlanmış dokusundan oluşmuştur.
- Bireyler arası farklılıklar analiz edilememiştir.
- Grup başına гана üç кошулма biyolojik үлгү bulunmaktadır.
- Balıkların cinsiyet dağılımı жана başlangıçtaki түс yoğunluğu маалыматlmemiştir.
- Tank таасирsi veya tank başına balık sayısı ачыкça raporlanmamıştır.
- Birleşik stres үчүн температура × UV таасирleşim testi yapılmamıştır.
- Birleşik таасирnin sinerjik, toplamsal veya antagonistik болгону көрсөтүлгөн эмес.
- DEG sayısının büyüklüğü fizyolojik hasarın şiddetiyle түздөн-түз eşleştirilemez.
- Melanin өлчөмı өлчөнгөн эмес.
- Görünür deri rengi nicelleştirilmemiştir.
- Kromatofor dağılımı veya deri histolojisi incelenmemiştir.
- ROS жана антиоксидант enzim таасирnlikleri belirlenmemiştir.
- сезгенүү жана апоптоз натыйжаları белок veya doku деңгээлinde тастыкталган эмес.
- Transkript деңгээлi белок өлчөмıyla тастыкталган эмес.
- WGCNA гана 12 кошулма örneğe dayanmaktadır.
- miRNA diferansiyel analizinde FDR yerine P < 0,05 eşiği билдирилген.
- miRNA hedefleri гана hesaplamalı катары tahmin жасалган.
- miRNA–mRNA ilişkileri işlevsel тажрыйбаlerle тастыкталган эмес.
- qRT-PCR гана sekiz генi kapsamaktadır.
- Primer tablosunda β-aktin bulunmasına rağmen normalizasyon үчүн rps9 kullanıldığı belirtilmiştir.
- изилдөөda hayvan etik kurul onayı veya izin numarası raporlanmamıştır.
- натыйжаlar гана incelenen жергиликтүү popülasyon жана laboratuvar koşullarıyla sınırlıdır.
изилдөө ne söylüyor?
- жылуулук жана UV алтын жондуу көлмө балыгыnın deri transkriptomunu belirgin biçimde değiştirmiştir.
- UV, ısıya ылайык дагы fazla айырмалуу экспрессияланган ген түзгөн.
- эң жогорку DEG жана miRNA sayısı birleşik stres grubunda табылган.
- MAPK жана PI3K-Akt yolları deri stres yanıtının merkezinde yer almıştır.
- Isı, UV жана birleşik stres ошол эле yollar ичинде айырмалуу ген örüntüleri түзгөн.
- меланогенез yolu айрыкча UV grubunda байыган.
- mitf ısı астында yükselmiş, UV астында азайган.
- тирозин метаболизми stres астында dinamik biçimde yeniden düzenlenmiştir.
- Sistein жана metiyonin метаболизмsı azalan ген kümesinde байыган.
- UV менен ilişkili modüller сезгенүү жана апоптоз генlerini içermiştir.
- Birleşik stresle ilişkili modül ftmt жана ctsb сыяктуу aday генler içermiştir.
- miRNA hedef tahminleri MAPK жана PI3K-Akt yollarını yeniden öne çıkarmıştır.
- стресс коргонуусу, metabolik ayarlama жана пигментация düzenlemesi birbirine байланыштуу görünmektedir.
изилдөө ne söylemiyor?
- Balığın алтын sırt renginin 48 saatte değiştiğini göstermemektedir.
- Melanin üretiminin arttığını veya azaldığını kanıtlamamaktadır.
- Birleşik stresin жылуулук жана UV арасында sinerjik таасир oluşturduğunu istatistiksel катары göstermemektedir.
- Belirlenen борбор генlerin stres yanıtına nedensel катары yön verdiğini kanıtlamamaktadır.
- Tahmin edilen miRNA hedeflerinin клетка ичинде gerçekten düzenlendiğini göstermemektedir.
- RNA değжарыкliklerinin ошол эле yönde белок değжарыкliği oluşturduğunu göstermemektedir.
- 48 saatlik yanıtın uzun dмаанилүү uyum mu yoksa geçici коргонуу mı болорун belirlememektedir.
- өстүрүү үчүн güvenli температура veya UV sınırı önermemektedir.
- Doğal pirinç tarlası koşullarındaki түс kaybını veya түс kararlılığını түздөн-түз ölçmemektedir.
изилдөөnın ыкмаi жана табылгаları
тажрыйба tasarımının teknik özeti
| Parametre | изилдөөda bildirilen колдонуу |
|---|---|
| Tür | алтын sırtlı Carassius auratus, GBCC |
| Balıkların durumu | Cinsel olgunluğa ulaşmış |
| Toplama yeri жана zamanı | Guizhou pirinç tarlaları, Haziran 2025 |
| Uyum dönemi | 25°C’de 7 күн |
| Gruplar | контроль, ısı, UV, ısı + UV |
| Isı колдонууsı | 34°C |
| UV колдонууsı | 185 nm UVC; 10 cm mesafe; 0,75 W/m² |
| UV süresi | İki күн boyunca günde 12 саат |
| Toplam тажрыйба süresi | 48 саат |
| биологиялык кайталоо | Grup başına 3 |
| бир tekrarın yapısı | Üç balığın havuzlanmış тери тканы |
| Toplam бириктирилген үлгү | 12 |
| Analizler | RNA-seq, miRNA-seq жана qRT-PCR |
mRNA analiz hattı
| Aşama | ыкма veya yazılım |
|---|---|
| RNA çıkarımı | TRIzol |
| Kalite kontrolü | Agilent 2100; RIN > 8 |
| Dizileme | Illumina NovaSeq 6000; paired-end 150 bp |
| Kalite filtreleme | Trimmomatic v0.39 |
| Referans генom | GCA_003368295.1_ASM336829v1 |
| Hizalama | HISAT2 v2.2.1 |
| İfade өлчөмı | StringTie v2.1.4; TPM |
| Diferansiyel ifade | edgeR v3.22.5 |
| DEG eşiği | |log2FC| > 1 жана FDR < 0,005 |
| GO analizi | GOseq |
| KEGG analizi | KOBAS; düzeltilmiş P < 0,05 |
| Dinamik kümelenme | Mfuzz |
| Eş ifade ağı | WGCNA |
miRNA analiz hattı
| Aşama | ыкма veya eşik |
|---|---|
| Dizileme | Illumina NovaSeq 6000 |
| Ön процессe | fastp v0.23.4 жана cutadapt |
| Tutulan uzunluk | 17–35 nükleotit |
| генoma hizalama | Bowtie v1.3.0; эң fazla бир uyumsuzluk |
| Kodlamayan RNA filtreleme | Rfam жана Repbase |
| miRNA belirleme | miRDeep2 жана miRBase |
| Hedef tahmini | miRanda; puan ≥ 150, эркин энергия ≤ −30 kcal/mol |
| Normalizasyon | CPM |
| Diferansiyel ifade | DESeq2 |
| miRNA eşiği | |log2FC| > 0,585 жана P < 0,05 |
ген жана miRNA değişiminin sayısal özeti
| Stres тобу | DEG sayısı | айырмалуу экспрессияланган miRNA sayısı |
|---|---|---|
| Isı | 9.042 | 95 |
| UV | 12.753 | 127 |
| Isı + UV | 13.175 | 160 |
Stres türlerine ылайык негизги yollar
| Grup | негизги KEGG yolları |
|---|---|
| Isı | MAPK, glisin-serin-treonin метаболизмsı, araşidonik asit метаболизмsı |
| UV | меланогенез, MAPK, PI3K-Akt, glisin-serin-treonin метаболизмsı |
| Isı + UV | Glisin-serin-treonin метаболизмsı, araşidonik asit метаболизмsı, endoplazmik retikulumda белок процессe |
Mfuzz натыйжаları
| Ölçüt | натыйжа |
|---|---|
| Kümelenen ген sayısı | 2.393 |
| Toplam küme | 4 |
| Küme 1 | 444 ген; генel өсүү; тирозин метаболизми жана izokinolin alkaloit biyosentezi |
| Küme 4 | 1.145 ген; генel azalma; tirozin, sistein жана metiyonin метаболизмsı |
| Temsilci Küme 1 генleri | tyr, th, dbh |
| Temsilci Küme 4 генi | comt |
WGCNA натыйжаları
| Ölçüt | натыйжа |
|---|---|
| Analize alınan генler | İfade varyansı эң жогорку yüzde 75 |
| Yumuşak eşik gücü | 7 |
| Minimum modül büyüklüğü | 200 ген |
| Toplam modül | 12 |
| Isıyla эң güçlü ilişki | Sarı modül; r = 0,93 |
| UV менен эң güçlü ilişki | Turkuaz modül; r = 0,91 |
| Birleşik stresle эң güçlü ilişki | Kahverengi modül; r = 0,92 |
qRT-PCR тастыктоосуnın özeti
| Başlık | колдонуу |
|---|---|
| Doğrulanan ген sayısı | 8 |
| генler | mitf, fgfr3, ywhaz, pgam2, gldc, mifa, ppp3ca, creb5l |
| Referans ген | rps9 |
| Hesaplama | 2−ΔΔCt |
| İstatistik | Tek yönlü ANOVA жана Duncan çoklu karşılaştırma testi; P < 0,05 |
| натыйжа | RNA-seq менен генel катары uyumlu ifade yönleri |
Şekillerin bilimsel mesajları
| Şekil | İçerik | негизги mesaj |
|---|---|---|
| Şekil 1 | Korelasyon, PCA, kümelenme, DEG sayıları жана volkan grafikleri | Stres grupları birbirinden ayrılmış; эң генiş ген değişimi birleşik grupta görülmüştür. |
| Şekil 2 | KEGG, Venn diyagramı жана bütünleşik stres-пигментация modeli | MAPK, PI3K-Akt, метаболизм жана меланогенез бирге yeniden düzenlenmiştir. |
| Şekil 3 | Mfuzz kümeleri жана zenginleşmeleri | Tirozin жана kükürtlü amino asit метаболизмsında karşıt dinamik programlar табылган. |
| Şekil 4 | WGCNA modül-tedavi ilişkileri | Isı, UV жана birleşik stres айырмалуу ген modülleri жана борбор генlerle байланыштырылган. |
| Şekil 5 | miRNA volkan grafikleri жана hedef KEGG yolları | miRNA değişimi stres kapsamıyla artmış, MAPK жана PI3K-Akt hedefleri öne çıkmıştır. |
| Şekil 6 | miRNA–mRNA bütünleşik yolları жана таасирleşim тармактары | Transkripsiyon sonrası düzenlemenin негизги stres sinyal ağlarına bağlandığı önerilmiştir. |
| Şekil 7 | RNA-seq жана qRT-PCR karşılaştırması | Sekiz генin генel ifade eğilimleri iki ыкмаde uyumlu табылган. |
Teknik табылгаların toplu değerlendirmesi
- Isı, UV жана birleşik stres deri үлгүlerinde ayrı transkriptom imzaları түзгөн.
- UV’nin ген ifadesi üzerindeki kapsamı ısıdan дагы генiştir.
- Birleşik колдонуу эң жогорку DEG жана miRNA sayısıyla ilişkilidir.
- MAPK жана PI3K-Akt бардык stres gruplarını birbirine bağlayan негизги düzenleyici eksenlerdir.
- ошол эле yol içindeki генlerin stres türüne ылайык zıt davranması, yanıtın bağlama байланыштуу болорун көрсөтөт.
- UV меланогенез yolunu belirgin biçimde değiştirmiştir.
- mitf жылуулук жана UV астында karşıt yönde düzenlenmiştir.
- тирозин метаболизми да artan да azalan ген kümelerinde yer almıştır.
- Stres yanıtı amino asit, lipid жана белок kalite контроль метаболизмsıyla bağlantılıdır.
- WGCNA ısı, UV жана birleşik strese özgü modül örüntüleri ortaya koymuştur.
- miRNA değişimleri mRNA деңгээлindeki MAPK жана PI3K-Akt натыйжаlarını desteklemiştir.
- qRT-PCR seçilmiş генlerde RNA-seq yönlerini doğrulamıştır.
- пигментация sonucu fenotipik катары ölçülmediğinden ağların görünür алтын renge таасирsi henüz çıkarım деңгээлindedir.
булак жана ыкма Notu
бул içerik, Feng Chen, Qinglan Zhou, Jinli Hu, Zhou Zhou, Ning Qin, Sheng Zeng, Ranran Dong, Li Li жана Xianbo Zhang тарабынан hazırlanan “Integrated transcriptomic and miRNA analyses reveal skin stress-response networks associated with pigmentation regulation in golden-backed crucian carp under heat and UV exposure” başlıklı изилдөөya dayanmaktadır.
изилдөө, алтын sırtlı Carassius auratus тери тканыnda ısı, UVC жана birleşik ısı-UVC maruziyetinin mRNA жана miRNA ifade örüntülerine таасирsini değerlendiren тажрыйбаsel бир preprint araştırma makalesidir.
Metinde ачыкça “This preprint research paper has not been peer reviewed” ifadesi yer almaktadır. ошондуктан изилдөө hakem değerlendirmesinden geçmemiştir. PDF’de hakemli бир dergi kabulü veya nihai hakemli yayın bilgisi bulunmamaktadır.
тажрыйба 48 saatlik akut maruziyete dayanmaktadır. UV колдонууsı 185 nm UVC lambasıyla gerçekleştirilmiştir жана doğal güneş ışığının UVA-UVB bileşimini bütünüyle temsil etmemektedir.
Her биологиялык кайталоо üç balığın havuzlanmış тери тканыndan даярдалган. Toplam 12 бириктирилген үлгү RNA-seq, miRNA-seq жана qRT-PCR analizlerinde колдонулган. Havuzlama bireysel değişkenliği azaltırken birey деңгээлindeki farklılıkların incelenmesini engellemektedir.
Birleşik stres grubunun дагы fazla DEG жана miRNA göstermesi, дагы kapsamlı бир молекулаer yanıtı desteklemektedir. бирок изилдөөda температура × UV istatistiksel таасирleşimi түздөн-түз sınanmadığından birleşik таасирnin sinerjik болгону sonucu çıkarılamaz.
miRNA hedefleri miRanda yazılımıyla tahmin жасалган. бул ilişkiler çift lusiferaz, miRNA inhibisyonu, miRNA taklidi veya hedef белок analiziyle тастыкталган эмес.
пигментацияla ilişkili натыйжаlar RNA жана yol zenginleştirme analizlerine dayanmaktadır. изилдөөda görünür түс, melanin өлчөмı, pigment клеткаsi sayısı, kromatofor dağılımı veya deri histolojisi өлчөнгөн эмес. ошондуктан çevresel stresin алтын sırt rengini değiştirdiği түздөн-түз көрсөтүлгөн эмес.
изилдөөda ROS, антиоксидант enzim таасирnliği, inflamatuvar белокler veya апоптоз göstergeleri biyoхимиялык катары өлчөнгөн эмес. бул süreçlere ilişkin натыйжаlar ген ifadesi жана тармак analizinden çıkarılmıştır.
PDF’de hayvan тажрыйбаlerine ilişkin etik kurul onay numarası veya ayrıntılı hayvan refahı prosedürü raporlanmamıştır.
Araştırma Guizhou Province Science and Technology Department Basic Research Fund жана Guizhou Modern Agricultural Industry Technology System тарабынан desteklenmiştir. авторлор çıkar çatışması bulunmadığını bildirmiştir.
бул Türkçe makale гана yüklenen PDF’deki тажрыйба tasarımı, dizileme ыкмаleri, şekiller, sayısal табылгаlar жана авторлорın tartışmasına dayanarak даярдалган. изилдөөda bulunmayan görünür түс değişimi, так nedensel ген ağı, doğrulanmış miRNA hedefi, өстүрүү eşiği veya uzun dмаанилүү fenotip kararlılığı iddiası eklenmemiştir.
Пикир калтырыңыз
E-mail дарегиңиз жарыяланбайт. Милдеттүү талаалар * менен белгиленген