


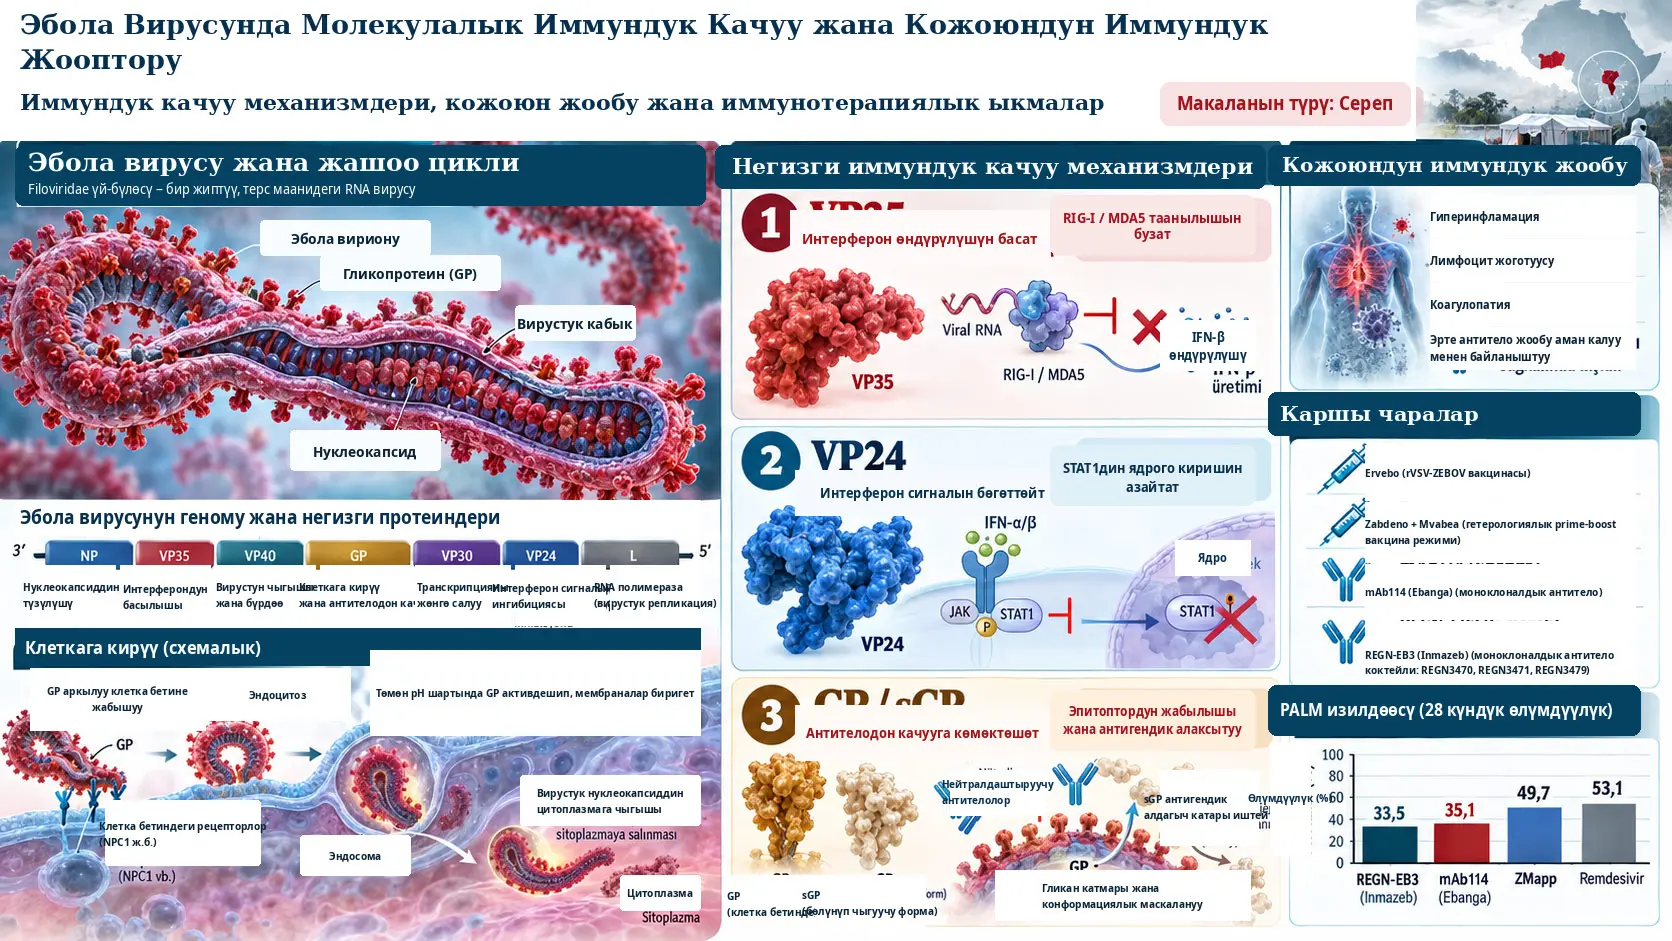
1. Булак текшерүүсү: 11/11 бет, 1-6-сүрөт, 1-2-таблица жана 46 булак каралды. 2. Илимий өзөк: Илимий механизмдер, сандар жана клиникалык жыйынтыктар жүктөлгөн серепке жана серептеги көрүнгөн сүрөт/таблица маалыматтарына гана негизделди. 3. Библиографиялык идентификация: Аталыш, авторлор, DOI, журнал, том/сан, беттер жана жарыяланган дата расмий журнал жазуусу менен текшерилди. 4. Изилдөө түрү: Булак жаңы эксперименттик изилдөө эмес; молекулалык вирусологияны, иммунологияны жана учурдагы клиникалык далилдерди синтездеген сереп. 5. Формула/ыкма текшерүүсү: Булакта борбордук математикалык теңдеме же жаңы статистикалык модель жок; ошондуктан формула ойлоп табылган жок. 6. Булактан тышкаркы өндүрүү: Жаңы дарылоо ийгилиги, иммундук механизм, учур саны, доза же клиникалык жыйынтык кошулган жок. 7. Түзүмдүк H2: Аталышы, Кыскача Мазмун, Кеңири Түшүндүрмө, Изилдөөнүн Ыкмасы жана Жыйынтыктары, Булак жана Ыкма Жөнүндө Эскертүү, Мета Тегдер ирети сакталат. 8. AEO: EBOV иммундук качуусу, VP35/VP24 айырмасы жана PALM клиникалык чечмелөөсү сыяктуу жогорку баалуу суроолор гана H2 кылынды. 9. Entity clarity: EBOV, EVD, VP35, VP24, VP40, GP, sGP, NPC1 жана негизги каршы чаралар так аныкталды. 10. Чечмелөө чеги: Молекулалык механизм, байкоочу адам иммундук маалыматтары жана рандомизацияланган клиникалык сыноо далили бири-биринен бөлүндү. 11. Markup integrity: Script, iframe, event handler жана тышкы визуалдык көз карандылык жок; SVG элементтери self-contained түрүндө даярдалды. 12. Котормо коопсуздугу: Кыскартуулар биринчи колдонууда ачылды; техникалык аттар, сандар, дары аттары жана бирдиктер ырааттуу сакталды. ВИЗУАЛДЫК БУЛАК СУБ-ӨТКӨӨЧҮ A. Булак 1-сүрөттөгү геном түзүлүшү Verianla үчүн оригиналдуу, масштабсыз inline SVG катары кайра курулду. B. Булак 2-сүрөттөгү вирион архитектурасы оригиналдуу түшүндүрмө SVG менен көрсөтүлдү. C. Булак 4-сүрөттөгү VP35/VP24/GP качуу байланыштары булак композициясы көчүрүлбөстөн кайра тартылды. D. Булак 6-сүрөттөгү так өлүм көрсөткүчтөрү жаңы Verianla график түзүмү менен кайра көрсөтүлдү. E. Булак 5-сүрөт үчүн сандык чийки маалымат жок болгондуктан ийри сызыктар жасалма тактык менен кайра тартылган жок; илимий билдирүү салыштырма таблица аркылуу берилди. F. Көрүнбөгөн булак сүрөтүнө багыттаган бош шилтеме калтырылган жок. АВТОРДУК УКУК / ЛИЦЕНЗИЯ СУБ-ӨТКӨӨЧҮ 1. Журнал саясаты CC BY-NC-SA 4.0 лицензиясын көрсөтөт. 2. Ачык жеткиликтүүлүк менен чексиз кайра колдонуу бир нерсе катары бааланган жок. 3. Колдонулган документ жарыяланган журнал версиясы. 4. Булак текст сүйлөм-сүйлөм же абзац-абзац түркчө которулган эмес. 5. Abstract жана conclusion механикалык түрдө кайра жазылган эмес. 6. Узун түз цитата колдонулган эмес. 7. Булак сүрөттөрү screenshot, crop же style transfer аркылуу көчүрүлгөн эмес. 8. Сандык маанилер жаңы Verianla таблица/график түзүмдөрүндө илимий факт катары колдонулду. 9. Булак шилтеме берген үчүнчү тараптын илимий материалдарынын укуктары негизги макала лицензиясына автоматтык түрдө кошулган жок. 10. NC жана SA шарттары көз жаздымда калган жок; булак визуалдарын түз кайра колдонуудан качылды. 11. Шилтеме кайра пайдаланууга уруксаттын ордуна коюлган жок. 12. Verianla баяны булак серептин сөз айкашы жана көрсөтүү ордуна өтүүчү нускага айландырылган жок. 13. Көп тилдүү версиянын булагы ушул көз карандысыз түркчө Verianla мазмуну болушу керек. 14. Укук же материал белгисиздигинде fail-closed колдонулду. ОСМАН ТҮРКЧӨСҮ (OTA) ЫЛАЙЫКТУУЛУК СУБ-ӨТКӨӨЧҮ 1. Класс: Шарттуу Ылайыктуу. 2. Жалпы инфекция, иммунитет жана оору баяны табигый илимий прозага өткөрүлүшү мүмкүн. 3. VP35, VP24, VP40, GP, NPC1 жана дары/вакцина аттары canonical техникалык token катары сакталат. 4. Интерферон, цитокин, karyopherin, моноклоналдык антитело жана гликопротеин терминологиясы текшерүүнү талап кылат. 5. Илимий детал OTA үчүн кыскартылбашы керек. 6. Ойдон чыгарылган араб/фарсы техникалык термин түзүлбөйт. 7. Осман түркчөсүн модернизациялоо ылайыктуулук чечими катары колдонулбайт. 8. Толук илимий латын транскрипциясы терминология текшерилгенден кийин колдонулушу керек. 9. Чечим теманын заманбаптыгына гана эмес, конкреттүү терминологиянын тыгыздыгына негизделет. 10. OTA агымы булак PDFнин түз котормосу эмес, көз карандысыз түркчө Verianla мазмунунун локализациясы болушу керек.
Эбола вирусу (Ebola virus, EBOV), Zaire ebolavirus түрүнө жана Filoviridae үй-бүлөсүнө кирген, терс маанидеги бир жиптүү RNA геномун алып жүргөн жана Эбола вирусу оорусуна (Ebola virus disease, EVD) себеп болгон филовирус. Бул сереп EBOVдун болжол менен 18,9 килобазалык геномунан жана жети генинен баштап вириондун түзүлүшүн, клеткага кирүү жана көбөйүү циклин, VP35 жана VP24 жүргүзгөн интерферонго каршы механизмдерди, GP/sGP негизиндеги антителодон качууну, тубаса жана адаптивдүү иммундук жоопторду жана бул биологиялык билим вакциналар менен моноклоналдык антитело дарылоолоруна кандай которулганын бирге карайт. Булактын негизги биологиялык алкагына ылайык, VP35 интерферон өндүрүүнүн башталышын, VP24 болсо өндүрүлгөн интерферонго клеткалык жоопту басат; GP1,2 жана sGP антителонун жетүүсүн тосуу, антигендик алаксытуу жана tetherinге каршы туруу сыяктуу кошумча качуу катмарларын түзөт. Мунун тескерисинче, аман калуу эрте жана натыйжалуу антитело жообу, көзөмөлдөнгөн сезгенүү жана функционалдык T-клетка жообу менен байланышса, өлүмгө алып баруучу жүрүштө көзөмөлсүз виремия, гиперинфламация, лимфоцит жоготуусу, коагулопатия жана шок алдыга чыгат.
Сереп бул механизмдик билимдин клиникалык маанисин көрсөткөн вакциналарды жана дарылоолорду да баалайт. rVSV-ZEBOV негизиндеги Ervebo жана Ad26.ZEBOV/MVA-BN-Filo негизиндеги Zabdeno + Mvabea вакцина ыкмаларын; ansuvimab (mAb114/Ebanga) жана REGN-EB3 (Inmazeb) сыяктуу GP-багытталган моноклоналдык антителолорду карайт. PALM рандомизацияланган изилдөөсүнөн берилген жыйынтыктарда 28 күндүк өлүмдүүлүк mAb114 менен %35,1 жана REGN-EB3 менен %33,5 болсо, ZMapp тобунда %49,7 жана remdesivir тобунда %53,1 деп берилген. Ошол эле учурда бул Verianla макаласынын негизги булагы жаңы клиникалык сыноо эмес, мурдагы молекулалык, эксперименттик, байкоочу жана клиникалык изилдөөлөрдү бириктирген сереп; механизмдик түшүндүрмөлөр менен рандомизацияланган бейтап жыйынтыктары бирдей далил деңгээли катары чечмеленбеши керек.
Серептин илимий максаты
Булактын негизги максаты Эбола вирусу кайсы протеиндерди алып жүрөрүн гана саноо эмес. Сереп вирустун молекулалык түзүлүшүн иммундук системадагы кесепеттерге жана андан кийин ушул билимден иштелип чыккан вакцина/антитело дарылоолоруна байланыштырган чынжыр түзөт. Бул чынжыр төрт деңгээлде окулат: вирустун түзүлүшү жана көбөйүшү; тубаса иммунитеттин молекулалык басылышы; мунун системалык сезгенүүгө жана адаптивдүү иммунитетке таасири; акырында коргоочу иммунитетти вакцина же терапиялык антитело аркылуу сырттан камсыз кылуу.
Эбола вирусу оорусунун тарыхый контексти
Булак EVD биринчи жолу 1976-жылы азыркы Конго Демократиялык Республикасы болгон Заирдеги Ямбуку жана Судандын түштүгүндөгү Нзарада болгон эки чоң геморрагиялык ысытма эпидемиясы аркылуу медицинада таанылганын баяндайт. Кийинки ондогон жылдарда экватордук Африкада көп эпидемиялар болуп, билдирилген учур-өлүм көрсөткүчтөрү вирус түрүнө, саламаттык сактоо кызматтарына жана эпидемия шарттарына жараша болжол менен %25 менен %90 аралыгында өзгөргөн.
2013–2016 Батыш Африка эпидемиясы булакта 28.600 дан ашык тастыкталган, ыктымал жана шектүү учур жана 11.325 өлүм менен каралат. Бул эпидемия Эболага каршы вакцина жана терапиялык каражаттарды иштеп чыгууну тездеткен чечүүчү бурулуш катары бааланган.
Ebolavirus тукумундагы алты түр
| Түр / вирус | Алгачкы аныкталышы | Булак баса белгилеген абал | Булакта билдирилген адам CFR аралыгы |
|---|---|---|---|
| Zaire ebolavirus (EBOV) | 1976, Yambuku, DRC | 2013–2016 Батыш Африка; 2018–2020 DRC; 2025 Kasai | Болжол менен %50–90 |
| Sudan ebolavirus (SUDV) | 1976, Nzara | Угандадагы бир нече эпидемия | Болжол менен %41–65 |
| Bundibugyo ebolavirus (BDBV) | 2007, Bundibugyo, Uganda | DRC 2012 жана булак жазылып жаткан учурдагы 2026 эпидемиясы | Болжол менен %25–36 |
| Taï Forest ebolavirus (TAFV) | 1994, Côte d'Ivoire | Документтештирилген жалгыз, өлүмгө алып келбеген адам учуру | Аныкталган эмес |
| Reston ebolavirus (RESTV) | 1989, Reston, АКШ | Macaque эпизоотиялары жана симптомсуз адам сероконверсиясы | Адам оорусу документтештирилген эмес |
| Bombali ebolavirus (BOMV) | 2018 | Булакта жарганаттарда аныкталган; адам инфекциясы белгисиз | Белгисиз |
Бул маанилер сереп топтогон тарыхый/адабияттык маалыматтар; макаланын өзү түзгөн жаңы эпидемиологиялык маалымат эмес. Мындан тышкары, 2025–2026 эпидемия маалыматы жарыя даярдалган учурдагы мезгилди чагылдырат.
EBOV геному кандай уюшулган?
EBOV геному болжол менен 18,9 kb узундуктагы, терс маанидеги, сегменттелбеген бир RNA молекуласы. Булакка ылайык, жети гендин ирети 3′-NP-VP35-VP40-GP-VP30-VP24-L-5′. Ар бир ген өзүнүн баштоо жана токтотуу сигналдары менен өзүнчө, cap жана полиаденилденген mRNA өндүрөт. Ген кошулуу чекиттериндеги транскрипциянын азайышынан улам геномдун 3′ учуна жакын NP транскрипти көбүрөөк, 5′ учундагы L транскрипти азыраак өндүрүлөт.
Жети вирустук протеин эмне кылат?
| Протеин | Серептеги негизги функция |
|---|---|
| NP | Вирустук RNA геномун каптап, рибонуклеопротеин комплексинин негизин түзөт. |
| VP35 | Вирустук полимеразанын кофактору жана ошол эле учурда тип-I интерферон өндүрүүнүн башталышын басат. |
| VP40 | Негизги матрикс протеини; вириондун жыйналышын, формаланышын жана бүрдөшүн башкарат. |
| GP | Клеткага жабышуу жана мембрана фузиясында катышкан беттик гликопротеинди жана RNA editing аркылуу ар кандай GP продуктыларын коддойт. |
| VP30 | Транскрипция активатору; өзгөчө NP транскриптинин натыйжалуу түзүлүшүндө anti-termination функциясын аткарат. |
| VP24 | Вирион түзүлүшүнүн бир бөлүгү жана интерферон сигнал жолунда STAT1дин ядролук ташылышын бөгөттөйт. |
| L | RNAга көз каранды RNA полимераза; вирустук транскрипциянын жана геном репликациясынын каталитикалык борбору. |
GP гениндеги RNA editing эмне үчүн маанилүү?
GP гени бир гана туруктуу протеин продуктусун өндүрүү менен чектелбейт. Булакка ылайык, редакцияланбаган GP mRNA көп бөлүнүп чыгуучу sGPни коддойт, ал эми вирустук полимеразанын белгилүү бир уридин тизмегинде жасаган “stuttering” учурунда шаблондо жок кошумча цитозиндин RNAга кошулушу окуу рамкасын өзгөртүп, толук узундуктагы мембраналык гликопротеиндин прекурсору GP0дун түзүлүшүн камсыздайт. GP0 андан кийин GP1 жана GP2 суббирдиктерине иштетилет. Бул редакция бир гендин вириондун беттик фузия протеинин да, иммундук качууда роль ойногон бөлүнүп чыгуучу антигендик продуктуну да өндүрүшүнө мүмкүнчүлүк берет.
Эбола вирионунун түзүлүшү
Булакка ылайык, Эбола вириондору кабыктуу, жип сымал жана айкын плейоморфтук. Таякча, шакек, U формасы, “6” формасы же койчунун таягына окшош формалар болушу мүмкүн. Диаметри болжол менен 80 nm; жиптин узундугу болжол менен 1.000 nmге жакындашы мүмкүн. Сырткы бетинде тримердик GP1,2 өсүндүлөрү жайгашат. Кожоюн клеткадан келип чыккан липид кабыктын дароо астында VP40 басымдуу матрикс катмары бар. Ичинде болсо терс маанидеги RNA геному, NP, VP35, VP30, VP24 жана L полимераза компоненттерин камтыган рибонуклеопротеин комплекси жайгашат.
VP40 эмне үчүн “түзүмдүк өзгөрткүч” катары каралат?
Сереп VP40 ар кандай конформацияларда ар кандай функцияларды аткара аларын баса белгилейт. Димердик VP40 плазма мембранасына ташылуу жана матрикс түзүлүшү менен байланыштуу; шакек сымал октамер RNA байлануу жана вирустук транскрипцияны жөнгө салуу менен байланышса, жип түзгөн жогорку олигомердик түзүлүштөр вирион матриксинин жана бүрдөөнүн түзүлүшүнө салым кошот. Демек, VP40тын функциясы жөн гана “кабык протеини” болуу эмес; конформациялык кайра түзүлүү вирустун жашоо циклиндеги көптөгөн функцияларынын негизи.
Эбола вирусу клеткага кантип кирет?
Булак сүрөттөгөн кирүү механизмин эки баскычтуу деп кароого болот. Биринчи баскычта GP1,2 клетка бетиндеги ар кандай attachment факторлор менен өз ара аракеттенип, вирионду клетка бетине топтойт. Сереп бул контекстте C-тип лектиндерди, TIM/TAM үй-бүлөсүндөгү фосфатидилсерин рецепторлорун жана гликозаминогликандарды атайт. Экинчи баскычта вирион макропиноцитоз аркылуу эндосомалык системага алынат. Эндосомада катепсин B жана L GP1дин гликан башын жана муцин сымал бөлүктөрүн алып, рецептор байлануу өзөгүн ачат. Иштетилген GP андан кийин кеч эндосома/лизосомадагы Niemann–Pick C1 (NPC1) протеинине байланышат; GP2нин фузия механизми эндосомалык мембрана менен вирустук мембрананын кошулушун камсыздап, рибонуклеопротеин комплексин цитоплазмага чыгарат.
Вирустук жашоо циклинин тогуз негизги кадамы
- Жабышуу: GP1,2 клетка бетиндеги attachment факторлор менен өз ара аракеттенет.
- Макропиноцитоз: Вирион эндосомалык бөлмөгө алынат.
- Эндосомалык иштетүү: Кычкылдануу менен катепсин B/L GP1ди протеолитикалык иштетет.
- NPC1 жана фузия: Иштетилген GP NPC1ге байланышат; GP2 мембрана фузиясын жүргүзөт жана RNP цитоплазмага чыгарылат.
- Баштапкы транскрипция: L·VP35 полимераза комплекси жети вирустук mRNA өндүрөт.
- Протеин синтези: GP0 эндоплазмалык ретикулум/Golgi жолунда иштетилип жатканда башка вирустук протеиндер цитоплазмалык рибосомаларда өндүрүлөт.
- Геном репликациясы: Толук узундуктагы оң маанидеги антигеном аралык продуктусу аркылуу жаңы терс маанидеги геномдор синтезделет.
- Жыйналуу: VP40 олигомерлери RNPлерди жана GP камтыган плазма мембрана аймактарын бириктирет.
- Бүрдөө жана чыгуу: Кожоюндун ESCRT компоненттери да колдонулуп, жаңы вириондор клетка мембранасынан бөлүнөт.
Эбола Вирусу Иммундук Системадан Кантип Качат?
EBOV тубаса жана гуморалдык иммунитетти бири-бирин толуктаган бир нече механизм менен басат: VP35 вирустук RNAнын таанылышына жана интерферон өндүрүүнүн башталышына кийлигишет; VP24 STAT1 камтыган антивирустук сигнал комплексинин ядрого ташылышын бөгөттөп интерферон жообун басаңдатат; GP1,2 жана бөлүнүп чыгуучу sGP коргоочу эпитопторду физикалык жаап, антителолорду алаксыта турган антигендик продуктыларды түзөт, кожоюн клеткасынын беттик молекулаларын маскалай алат жана tetherin аркылуу бүрдөөгө коюлган чектөөгө каршы турат.
VP35 менен VP24 Ортосундагы Иммундук Качуу Айырмасы Эмне?
VP35 жана VP24 интерферон системасын ар башка чекиттерде басат: VP35 вирустук кош жиптүү RNAнын RIG-I/MDA5 огу аркылуу таанылышын жана IRF3/IRF7 активдешүүсүн бөгөттөп IFN-α/β өндүрүлүшүн азайтат, VP24 болсо интерферон өндүрүлгөн болсо да фосфорланган STAT1дин karyopherin-α5 аркылуу ядрого ташылышына кийлигишип, интерферон-стимулдалган гендердин ачылышын бөгөттөйт. Ошондуктан булак механизмди эки баскычтуу блокада катары карайт: VP35 “интерферон өндүрүүнү”, VP24 болсо “интерферонго жоопту” бутага алат.
VP35тин интерферон индукциясын бөгөттөшү
Кадимки учурда клетка ичиндеги вирустук кош жиптүү RNA RIG-I жана MDA5 сыяктуу сенсорлор тарабынан таанылат. Бул таануу MAVS, TBK1/IKKε жана IRF3/IRF7 жолун иштетип, тип-I интерферон гендеринин транскрипциясына алып келет. Серепке ылайык, VP35тин C-terminal interferon-inhibitory domainи вирустук dsRNAга байланышып, бул RNAны RIG-Iге окшош рецепторлордон жашыра алат. Ошондой эле PACT жана IRF3 киназалары сыяктуу индукция системасынын компоненттери менен өз ара аракеттенип, IRF3/IRF7 фосфорланышын жана IFN-β транскрипциясын бузат.
VP24түн интерферон сигналын бөгөттөшү
Коңшу клеткалардан интерферон бөлүнүп чыккан болсо да, антивирустук жооп түзүлүшү үчүн IFNAR1/2 сигналынан кийин STAT протеиндери активдешип, антивирустук транскрипция комплекси ядрого ташылышы керек. Серепке ылайык, VP24 karyopherin-α5теги бир байлануу аймагын колдонуп фосфорланган STAT1 менен атаандашат. Натыйжада STAT1 камтыган комплекстин ядрого кириши бөгөттөлүп, интерферон-стимулдалган гендердин натыйжалуу активдешүүсү бузулат.
GP1,2 жана sGP эмне үчүн кирүү протеиндери гана эмес?
Вирион бетиндеги GP1,2 клеткага кирүү үчүн зарыл, бирок сереп GP иммундук качууда да көп катмарлуу роль ойноорун билдирет. GP1деги гликан башы жана тыгыз O-гликозилденген муцин сымал аймак сакталган эпитопторго антителонун жетишин азайтышы мүмкүн. Бөлүнүп чыккан sGP GP1 менен жалпы N-terminal эпитопторду алып жүргөндүктөн, айланып жүргөн anti-GP антителолорун байланыштырган антигендик decoy милдетин аткара алат. Беттик GP ошондой эле MHC class I жана β1-integrin сыяктуу клеткалык молекулаларды физикалык маскалап, кожоюн чектөөчү протеин tetherinдин жаңы вириондорду клетка бетинде кармап калышына каршы тура алат.
Тубаса иммунитеттин алгачкы бута клеткалары
Серепке ылайык, моноциттер, макрофагдар жана дендриттик клеткалар EBOV инфекциясынын эрте жана маанилүү репликация жерлеринин бири. VP35 жана VP24 интерферон системасын баскандыктан бул клеткалар күчтүү вирустук репликацияга жол берип, жетиштүү антивирустук эскертүү түзө албай калышы мүмкүн. Инфекцияланган дендриттик клеткалардын жетилүүсүнүн бузулушу, ко-стимулятор молекулалардын жетишсиз өсүшү жана анормалдуу цитокин профилдери кийинки T-клетка жообунун түзүлүшүн да алсыратышы мүмкүн.
“Цитокин бороону” бул жерде эмнени билдирет?
Интерферон огу басылганына карабастан, инфекцияланган моноцит жана макрофагдардын башка сезгенүү жолдору ашыкча активдешиши мүмкүн. Булак TNF-α, IL-1β, IL-6, IL-8 жана MCP-1 сыяктуу медиаторлордун өсүшүн жана оор/өлүмгө алып баруучу ооруда жогорку IL-10 жана IP-10 деңгээлдерин баса белгилейт. Бул тартипсиз системалык сезгенүү кан тамыр өткөрүмдүүлүгүнүн жогорулашына, жаңы моноциттердин активдешүүсүнө жана эрте EVDдеги ысытма, алсыздык жана ашказан-ичеги суюктук жоготуусу сыяктуу системалык белгилерге салым кошушу мүмкүн.
Коагулопатия эмне үчүн кан тамыр инфекциясы гана эмес?
Булак Эболадагы кан кетүү бузулушун түз жана кеңири эндотелий инфекциясы менен түшүндүрүүнүн ордуна коагуляция системасынын тартипсиздиги менен байланыштырат. Инфекцияланган моноцит жана макрофагдардын бетинде tissue factor экспрессиясынын өсүшү экстринсикалык коагуляция жолун активдештириши мүмкүн; кеңири фибрин түзүлүшү жана диссеминацияланган интраваскулярдык коагуляция өнүгүшү мүмкүн. Уюу факторлору менен тромбоциттердин сарпталышы кан кетүүгө салым кошот. Эндотелий бузулушу жана кан тамыр өткөрүмдүүлүгүнүн өсүшү болсо цитокиндер жана бөлүнүп чыккан GP сыяктуу кыйыр механизмдер менен күчөшү мүмкүн.
Лимфоциттер инфекцияланбай туруп эмне үчүн азаят?
Сереп баса белгилеген өзгөчөлүктөрдүн бири — EBOV лимфоциттерди натыйжалуу инфекциялабаса да, өлүмгө алып баруучу EVDде CD4+ жана CD8+ T клеткалары менен NK клеткалары олуттуу азайышы мүмкүн. Булак муну “bystander apoptosis” катары карайт. Күчтүү сезгенүү өлүм сигналдары жана дендриттик клетка колдоосунун жоголушу вирус түз көбөйбөгөн лимфоциттердин жоголушуна алып келиши мүмкүн.
Гуморалдык жооп аман калууда кантип айырмаланат?
Булакка ылайык, аман калган бейтаптарда вируска мүнөздүү IgM симптомдордун биринчи жумасында көрүнүшү мүмкүн; күчтүүрөөк жана туруктуу GP/NPге багытталган IgG жообу экинчи жумада пайда болуп, вирустук тазалануу менен бир мезгилге туш келиши мүмкүн. Өлүмгө алып баруучу учурларда антитело жообу жетиштүү эрте пайда болбошу же пайда болгон антителолор коргоочу эмес эпитопторго багытталышы мүмкүн. Сереп эрте жана туура спецификалуулуктагы антителолордун маанисин моноклоналдык антитело дарылоолорунун клиникалык ийгилиги менен да байланыштырат.
T-клетка жообунун саныбы же сапатыбы маанилүү?
Булак өлүмгө алып баруучу EVD жөнөкөй “иммундук шал” эмес экенин баса белгилейт. Fatal учурларда да күчтүү T-клетка активдешүүсү көрүнүшү мүмкүн; бирок активдешүүнүн сапаты башка. Аман калгандарда эртерээк жана көзөмөлдөнгөн CD8+ T-клетка активдешүүсү, сакталган лимфоцит сандары жана эс тутум жообуна карай кысылуу көрүнсө, fatal жүрүштө ашыкча, бирок тартипсиз активдешүү, exhaustion белгилери, азайган лимфоцит сандары жана натыйжалуу антиген-спецификалык функциянын жоголушу билдирилген.
Аман калуу менен өлүмгө алып баруучу жүрүштү ажыраткан иммундук үлгү
| Тармак | Аман калуу менен байланышкан үлгү | Өлүмгө алып баруучу жүрүш менен байланышкан үлгү |
|---|---|---|
| Вирустук жүк | Эрте мезгилде чектелген | Көзөмөлсүз жана жогорку виремия |
| Сезгенүү | Көзөмөлдөнгөн жана убакыт өтүшү менен басаңдаган жооп | Өзүн күчөткөн гиперинфламация |
| Антитело | Эрте IgM жана кийин күчтүү GP-спецификалык IgG | Кеч, жетишсиз же коргоочу эмес антитело жообу |
| T клеткалары | Функционалдык, антиген-спецификалык жооп жана эс тутумдун өнүгүшү | Ашыкча, бирок тартипсиз активдешүү, exhaustion жана клетка жоготуусу |
| Лимфоцит саны | Жакшыраак сакталат | Айкын bystander apoptosis жана лимфоцит жоготуусу |
| Коагуляция | Жакшыраак көзөмөлдөнөт | Коагулопатия / DIC өнүгүшү |
| Жыйынтык | Вирустук тазалануу жана айыгуу | Шок жана көп органдуу жетишсиздикке өтүү |
Изилдөөнүн Ыкмасы жана Жыйынтыктары
Бул булак оригиналдуу эксперименттик изилдөө болбогондуктан классикалык “Materials and Methods” бөлүмү жок. Авторлор молекулалык вирусология, иммунология, адам когорттору, жаныбар изилдөөлөрү, вакцина сыноолору жана рандомизацияланган клиникалык изилдөөлөрдөн турган адабиятты баяндоочу түрдө синтездешет. Булак 46 шилтемени тизмектейт; бирок системалуу маалымат базасын издөө, издөө сабы, киргизүү/чыгаруу критерийлери, PRISMA агым схемасы, risk-of-bias баалоосу же мета-анализ протоколу жөнүндө билдирбейт. Ошондуктан изилдөө системалуу сереп же мета-анализ катары эмес, илимий баяндоочу сереп катары окулушу керек.
Сереп колдонгон далил катмарлары
| Далил түрү | Макаладагы колдонуу мисалы | Эмнени көрсөтөт? |
|---|---|---|
| Молекулалык / клеткалык изилдөөлөр | VP35, VP24, GP, NPC1, tetherin механизмдери | Вирустук протеин–кожоюн өз ара аракеттенүүлөрүнүн биологиялык механизмин колдойт. |
| Жаныбар / примат изилдөөлөрү | Вакцина коргоосу, антитело дарылоосу, коагуляция механизмдери | Механизмдин жана кийлигишүүнүн тирүү системадагы таасирин изилдейт; адамдагы клиникалык жыйынтык эмес. |
| Адамдагы байкоочу изилдөөлөр | Вирустук жүк, цитокин, T-клетка жана антитело профилдери | Аман калуу жана өлүмгө алып баруучу жүрүш менен байланышкан адам иммунологиялык үлгүлөрүн көрсөтөт. |
| Рандомизацияланган клиникалык сыноо | PALM | Терапиялык топтор арасында бейтап өлүмдүүлүгүн салыштырган түз клиникалык далил берет. |
| Вакцина талаа сыноосу | Guinea ring vaccination | Эпидемия шартында вакцинанын коргоочу таасирин баалаган клиникалык/талаа далилин берет. |
Вакциналар кандай иммунологиялык логиканы колдонот?
Серептин алкагында вакциналар вирус табигый инфекция учурунда түзгөн иммундук качуу шарттарынан көз карандысыз GP1,2 антигенин иммундук системага сунуштап, алдын ала коргоочу антитело жана клеткалык жооп түзүүнү максат кылат. Булак эки негизги лицензияланган ыкманы баса белгилейт: rVSV-ZEBOV негизиндеги Ervebo жана гетерологиялык Ad26.ZEBOV / MVA-BN-Filo режими болгон Zabdeno + Mvabea.
| Өнүм | Түр | Платформа / мазмун | Булакта берилген биринчи жактыруу | Негизги колдонуу |
|---|---|---|---|---|
| Ervebo (rVSVΔG-ZEBOV-GP) | Тирүү рекомбинанттык бир дозалуу вакцина | EBOV GP1,2 экспрессиялаган VSV вектору | EMA жана FDA, 2019; WHO prequalification | EBOV себеп болгон EVDнин алдын алуу / ring vaccination |
| Zabdeno + Mvabea | Гетерологиялык эки дозалуу prime–boost вакцина | Ad26.ZEBOV prime + MVA-BN-Filo boost | EMA, 2020 | EVDнин алдын алуу |
| Inmazeb (REGN-EB3) | Үч моноклоналдык антителодон турган коктейль | Atoltivimab + maftivimab + odesivimab | FDA, 2020 | EBOV себеп болгон EVD дарылоосу |
| Ebanga (ansuvimab; mAb114) | Бир адамдык моноклоналдык антитело | GP1ге каршы антитело | FDA, 2020 | EBOV себеп болгон EVD дарылоосу |
Ervebo үчүн булакта кандай клиникалык далил баяндалат?
Сереп 2015 Guinea эпидемиясы учурунда жүргүзүлгөн ачык белгилүү, кластер-рандомизацияланган ring vaccination изилдөөсүн баяндайт. Тастыкталган учурлардын контакттары жана алардын контакттарынан түзүлгөн кластерлер дароо же кечиктирилген вакцинацияга дайындалган. Булак дароо вакцинацияланган топто вакцинациядан кийинки 10-күндөн тартып учур болбогонун жана бул жогорку коргоочулук менен шайкеш экенин билдирет. Бул табылга вакцина “ар бир шартта %100 коргойт” деп жалпыланбашы керек; изилдөөнүн өз дизайны жана убакыт терезеси ичинде чечмелениши керек.
Моноклоналдык антитело дарылоолорунун логикасы
Моноклоналдык антитело дарылоолору бейтаптын натыйжалуу гуморалдык жооп түзүшүн күтүүнүн ордуна белгилүү EBOV GP эпитопторун бутага алган даяр антителолорду берет. ZMapp үч химердик антителодон турган мурунку муундагы коктейль. mAb114 1995 Kikwit эпидемиясынан аман калган бир адамдан клондолгон толук адамдык антитело болуп, GP1 баш аймагын бутага алат. REGN-EB3 болсо ар башка GP эпитопторуна байланышкан atoltivimab, maftivimab жана odesivimab антителолорунан турган үчтүк коктейль.
PALM Рандомизацияланган Сыноосу Эмнени Көрсөттү?
PALM изилдөөсү 2018–2020 DRC эпидемиясында оптималдаштырылган колдоо дарылоосуна кошулган mAb114 жана REGN-EB3 топтору ZMapp көзөмөл тобуна салыштырмалуу төмөн 28 күндүк өлүмдүүлүк менен байланышканын көрсөткөн рандомизацияланган клиникалык далил. Серептин негизги тексти 681 бейтап рандомизацияланганын билдирет; булак 6-сүрөт график башында N=673 деп колдонот жана бул айырманы сереп ичинде түшүндүрбөйт. Негизги текстте 28 күндүк өлүмдүүлүк ZMapp үчүн %49,7, remdesivir үчүн %53,1, mAb114 үчүн %35,1 жана REGN-EB3 үчүн %33,5 деп берилет.
| Дарылоо тобу | Талданган бардык бейтаптардагы 28 күндүк өлүмдүүлүк | Баштапкы вирустук жүгү төмөн кичи топтогу өлүмдүүлүк | Кичи топтун аныктамасы |
|---|---|---|---|
| ZMapp | %49,7 | %24,5 | NP cycle threshold > 22 |
| Remdesivir | %53,1 | %29,0 | NP cycle threshold > 22 |
| mAb114 / ansuvimab | %35,1 | %9,9 | NP cycle threshold > 22 |
| REGN-EB3 | %33,5 | %11,2 | NP cycle threshold > 22 |
Эрте дарылоо эмне үчүн маанилүү көрүнөт?
Серепте баштапкы вирустук жүгү төмөн болуп кайрылган бейтаптарда антитело дарылоо топторундагы өлүмдүүлүк кыйла төмөн экени баса белгиленет. Негизги текст симптомдор башталгандан ооруканага кабыл алынганга чейинки ар бир кошумча күн өлүм oddsунда болжол менен %11 өсүү менен байланышканын да билдирет. Бул сан серептин өз регрессия анализи эмес; PALM изилдөөсүнөн берилген клиникалык табылга.
Remdesivir бул серепте кандай орунда турат?
Remdesivir вирустук L полимеразаны бутага алган нуклеотид аналогу про-дары. Булак эрте берилгенде rhesus macaque моделинде күчтүү коргоо көрсөткөнүн, бирок PALM клиникалык сыноосунда антитело дарылоолоруна салыштырмалуу жогорку өлүмдүүлүк тобунда калганын баса белгилейт. Бул мисал жаныбар моделиндеги антивирустук ийгилик менен адамдагы клиникалык жыйынтык бирдей эмес экенин жана дарылоонун убактысы менен оорунун иммунологиялык баскычы маанилүү экенин көрсөтөт.
Булак жазылган мезгилдеги калган каршы чара боштуктары
Сереп лицензияланган вакцина жана антитело каршы чаралары негизинен EBOV, башкача айтканда Zaire ebolavirusга багытталганын билдирет. Булактын Июнь 2026 контекстинде SUDV жана BDBV үчүн жактырылган вакцина же дарылоо жок экени, Bundibugyo жооп чарасы үчүн MBP134, maftivimab жана remdesivir сыяктуу талапкерлерди баалоо күн тартибинде экени айтылат. Бул билдирүүлөр жарыяланган күндөгү абалды чагылдырат жана кийинки жөнгө салуучу өнүгүүлөрдүн ордуна колдонулбайт.
Вирустук туруктуулук эмне үчүн курч инфекциядан кийин да маанилүү?
Кандагы вирустун тазаланышы EBOV менен кожоюн ортосундагы мамиле толук бүттү дегенди билдирбеши мүмкүн. Булак вирустук RNA урук бези, көз, борбордук нерв системасы, плацента жана эмчек сүтү сыяктуу иммундук көзөмөл башка болгон аймактарда айлар же жылдар бою табылышы мүмкүн экенин баяндайт. Эркек аман калгандардын уругунда вирустук RNA 6–12 ай жана айрым адамдарда андан узак табылышы мүмкүн экени; жыныстык жол менен жугуу документтештирилгени айтылат.
Сереп ошондой эле 2021 Guinea эпидемиясынын геномдук эпидемиология аркылуу 2013–2016 эпидемиясынан аман калган бир адамдагы узак мөөнөттүү вирустук туруктуулук жана кайра активдешүү менен байланышын маанилүү мисал катары колдонот. Булактын чечмелөөсүндө бул окуя вирус бир кожоюнда кеминде болжол менен беш жыл үнсүз кала аларын көрсөтүүчү күчтүү далил.
Post-Ebola синдрому кандай көйгөйлөрдү камтышы мүмкүн?
Серепте аман калгандарда увеит, муун жана таяныч-кыймыл оорулары, неврологиялык жана когнитивдик көйгөйлөр жана угуу жоготуусу сыяктуу узак мөөнөттүү кесепеттер билдирилет. Булак айрыкча айрым увеит учурларында көз суюктугунда вирус табылышы мүмкүн экенин эске салат. Ошондуктан аман калгандарды узак мөөнөттүү көзөмөлдөө реабилитация маселеси гана эмес, айрым шарттарда инфекцияны көзөмөлдөө жана вирустук туруктуулукту түшүнүү үчүн да маанилүү.
Сереп түз колдогон негизги илимий алкак
- EBOVдун болжол менен 18,9 kb терс маанидеги RNA геному жети негизги генди камтыйт.
- GP/NPC1 огу эндосомалык клетка киришинде борбордук мааниге ээ.
- VP40 вирион жыйналышынын жана бүрдөөнүн негизги түзүмдүк жөнгө салуучуларынын бири.
- VP35 жана VP24 тип-I интерферон системасынын ар башка баскычтарын басат.
- GP1,2 жана sGP антителодон качуу жана кожоюн чектөө механизмдери менен өз ара аракеттенет.
- Fatal EVD жетишсиз иммунитет менен гана эмес, ашыкча жана тартипсиз сезгенүү менен да мүнөздөлөт.
- Аман калуу эрте гуморалдык жооп, көзөмөлдөнгөн сезгенүү жана функционалдык T-клетка жообу менен байланыштуу.
- GP-багытталган вакцинация жана моноклоналдык антитело дарылоолору молекулалык иммунология билиминин түз клиникалык колдонмолорунун бири.
- PALM изилдөөсү mAb114 жана REGN-EB3 үчүн ZMappка салыштырмалуу төмөн 28 күндүк өлүмдүүлүктү көрсөткөн.
- Вирустук туруктуулук жана post-Ebola кесепеттери курч оору бүткөндөн кийин да клиникалык мааниге ээ.
Сереп өзү далилдебеген нерселер
- Сереп VP35 же VP24 механизмдерин өз лабораториясында кайра эксперименттик түрдө өлчөгөн эмес.
- Сереп жаңы вакцина же дары иштеп чыккан эмес.
- Сереп өз бейтап когортунда өлүмдүүлүк анализин жүргүзгөн эмес.
- PALM өлүмдүүлүк маанилери бул серептин эмес, шилтеме берилген рандомизацияланган клиникалык изилдөөнүн жыйынтыктары.
- Схемалык иммундук ийри сызыктарды чийки бейтап убакыт сериясы катары чечмелөөгө болбойт.
- Булакта көрсөтүлгөн 2025–2026 эпидемия жана өнүмгө жетүү маалыматы түбөлүккө актуалдуу деп кабыл алынбайт.
- EBOV үчүн натыйжалуу болгон лицензияланган өнүмдөр башка ebolavirus түрлөрүндө автоматтык түрдө ошондой эле клиникалык натыйжалуулукка ээ деп жыйынтык чыгарууга болбойт.
Серептин методологиялык чектөөлөрү
- Макала системалуу сереп протоколун билдирбейт.
- Маалымат базасын издөө стратегиясы жана дата аралыгы берилген эмес.
- Киргизүү жана чыгаруу критерийлери көрсөтүлгөн эмес.
- Булак изилдөөлөр үчүн formal risk-of-bias же сапат баллдоо билдирилген эмес.
- Мета-анализ жүргүзүлгөн эмес.
- Молекулалык, жаныбар, адамдагы байкоочу жана рандомизацияланган клиникалык маалыматтар бир баянда колдонулгандыктан, ар бир жыйынтыктын далил деңгээли өзүнчө айырмаланышы керек.
- 5-сүрөт сыяктуу айрым графиктер схемалык; аларды сандык бейтап убакыт сериясы катары кайра эсептөөгө болбойт.
- PALM бөлүмүндөгү негизги тексттеги 681 рандомизацияланган бейтап менен 6-сүрөттөгү N=673 белгисинин айырмасы бул серепте түшүндүрүлгөн эмес.
Булак жана Ыкма Жөнүндө Эскертүү
Түпнуска аталыш: Molecular Evasion and Immune Responses to Ebola Virus- an Approach to Ebola Evasion Mechanism and Immunotherapeutic
Авторлор: Muhammad Haidar Zaman; Nawab Ali; Bilal Ahmed; Chengyuan Li; Liang Fenghuitong; Hamza.
Жооптуу автор: Muhammad Haidar Zaman.
Мекемелер: Department of Health and Biological Sciences, Abasyn University, Peshawar, Pakistan; IBD-NSFZ, Nanjing Normal University, Nanjing, PR China; Department of Physiotherapy, Faculty of Rehabilitation and Allied Health Sciences, Riphah International University, Malakand, Pakistan; School of Medicine, Qilu Institute of Technology, Jinan, PR China; Faculty of Medicine, School of Biomedical Engineering, The University of Hong Kong, PR China; Institute of Biotechnology and Genetic Engineering, The University of Agriculture, Peshawar, Pakistan.
Журнал: Journal of Carcinogenesis.
ISSN: 1477-3163.
Том / сан: Volume 25, Issue 1.
Беттер: 630–640.
Жарыяланган дата: 26 Июнь 2026.
DOI: 10.66838/J.Carcinog.25.1.630-640
Басмачы маалыматы: Булак PDF footerинде мазмун Carcinogenesis Press үчүн Wolters Kluwer-Medknow тарабынан жарыяланган деп көрсөтүлгөн.
Булак түрү: Молекулалык вирусологияны, иммунологияны, вакциналарды жана иммунотерапиялык каршы чараларды синтездеген баяндоочу сереп. Расмий сайт макаланы “Articles” бөлүмүндө тизмектейт; булак текст өзүн “review” деп аныктайт.
Рецензиялоо: Journal of Carcinogenesis өзүн рецензияланган журнал деп аныктайт жана берилген макалалар эки тышкы эксперт тарабынан бааланарын билдирет. Колдонулган документ preprint эмес.
Лицензия: Журналдын учурдагы ачык жеткиликтүүлүк саясаты Creative Commons Attribution-NonCommercial-ShareAlike 4.0 (CC BY-NC-SA 4.0) лицензиясын көрсөтөт. Verianlaнын commercial/non-commercial статусу бул макаланын алкагында болжолдонбогондуктан булак сүрөттөрү түз кайра колдонулган эмес; илимий байланыштар көз карандысыз SVG жана HTML түзүмдөрү менен кайра берилген.
Каржылоо: Жүктөлгөн 11 беттик булакта өзүнчө жана ачык Funding билдирүүсү көрүнбөйт. Мындан каржылоо болгон эмес деген жыйынтык чыгарылган жок.
Кызыкчылыктардын кагылышы: Жүктөлгөн булакта өзүнчө жана ачык Conflict of Interest билдирүүсү көрүнбөйт. Кызыкчылыктардын кагылышы жок деп болжолдонгон эмес.
Маалымат жеткиликтүүлүгү: Бул изилдөө жаңы маалымат топтомун түзбөгөн сереп жана жүктөлгөн документте өзүнчө Data Availability билдирүүсү жок.
Автордук салымдар: Булакта CRediT же авторлордун деталдуу жеке салымдары бөлүмү жок; ошондуктан салым ролдору болжолдонгон эмес.
Шилтеме саны: Булак 46 библиографиялык шилтемени тизмектейт.
Булак 1-сүрөт: Болжол менен 18,9 kb EBOV геномунун жети гендүү түзүлүшүн жана GP RNA editing аймагын көрсөтөт. Verianlaда ошол эле илимий байланыштар башка композицияда, масштабсыз SVG катары кайра курулган.
Булак 2-сүрөт: GP1,2 беттик өсүндүлөрүн, липид кабыкты, VP40/VP24 матрикс катмарын жана RNP комплексинен турган жип сымал вирион архитектурасын көрсөтөт. Verianlaда оригиналдуу түшүндүрмө схема колдонулган.
Булак 3-сүрөт: Жабышуудан макропиноцитозго, NPC1ге көз каранды фузияга, транскрипцияга, репликацияга, VP40 жыйналышына жана бүрдөөгө чейинки тогуз баскычтуу жашоо циклин көрсөтөт. Илимий ирет Verianlaда номерленген процесс агымы менен берилген.
Булак 4-сүрөт: VP35тин интерферон индукциясына, VP24түн интерферон сигналына жана GP/sGPнин антитело/tetherin огуна кийлигишүүсүн көрсөтөт. Verianlaда бул байланыштар булак композициясы көчүрүлбөстөн кайра тартылган.
Булак 5-сүрөт: Аман калган жана fatal EVDде виремия, цитокин, лимфоцит жана антитело жоопторунун схемалык убакыт байланышын көрсөтөт. Чийки бейтап убакыт сериясы жок болгондуктан Verianla так ийри координаттарды түзгөн эмес; илимий билдирүүнү салыштырма таблица менен берген.
Булак 6-сүрөт: PALM дарылоо топторундагы 28 күндүк өлүмдүүлүктү жана 2019–2026 аралыгындагы каршы чара этаптарын көрсөтөт. Өлүмдүүлүктүн ачык белгиленген пайыздары көз карандысыз Verianla графигинде кайра тартылган.
Маанилүү булак ичиндеги сан эскертүүсү: PALM бөлүмү негизги текстте 681 бейтап рандомизацияланганын билдирсе, булак 6-сүрөт башында N=673 көрүнөт. Сереп бул айырманын себебин түшүндүрбөйт. Verianla бул эки санды үнсүз түрдө жараштырган эмес.
Негизги методологиялык чек: Изилдөө системалуу сереп протоколун, formal адабият издөө ыкмасын, risk-of-bias анализин же мета-анализди билдирбейт. Молекулалык механизмдер, клиникалык байкоолор жана рандомизацияланган сыноо жыйынтыктары ар башка далил деңгээлдеринде бааланышы керек.
Пикир калтырыңыз
E-mail дарегиңиз жарыяланбайт. Милдеттүү талаалар * менен белгиленген