

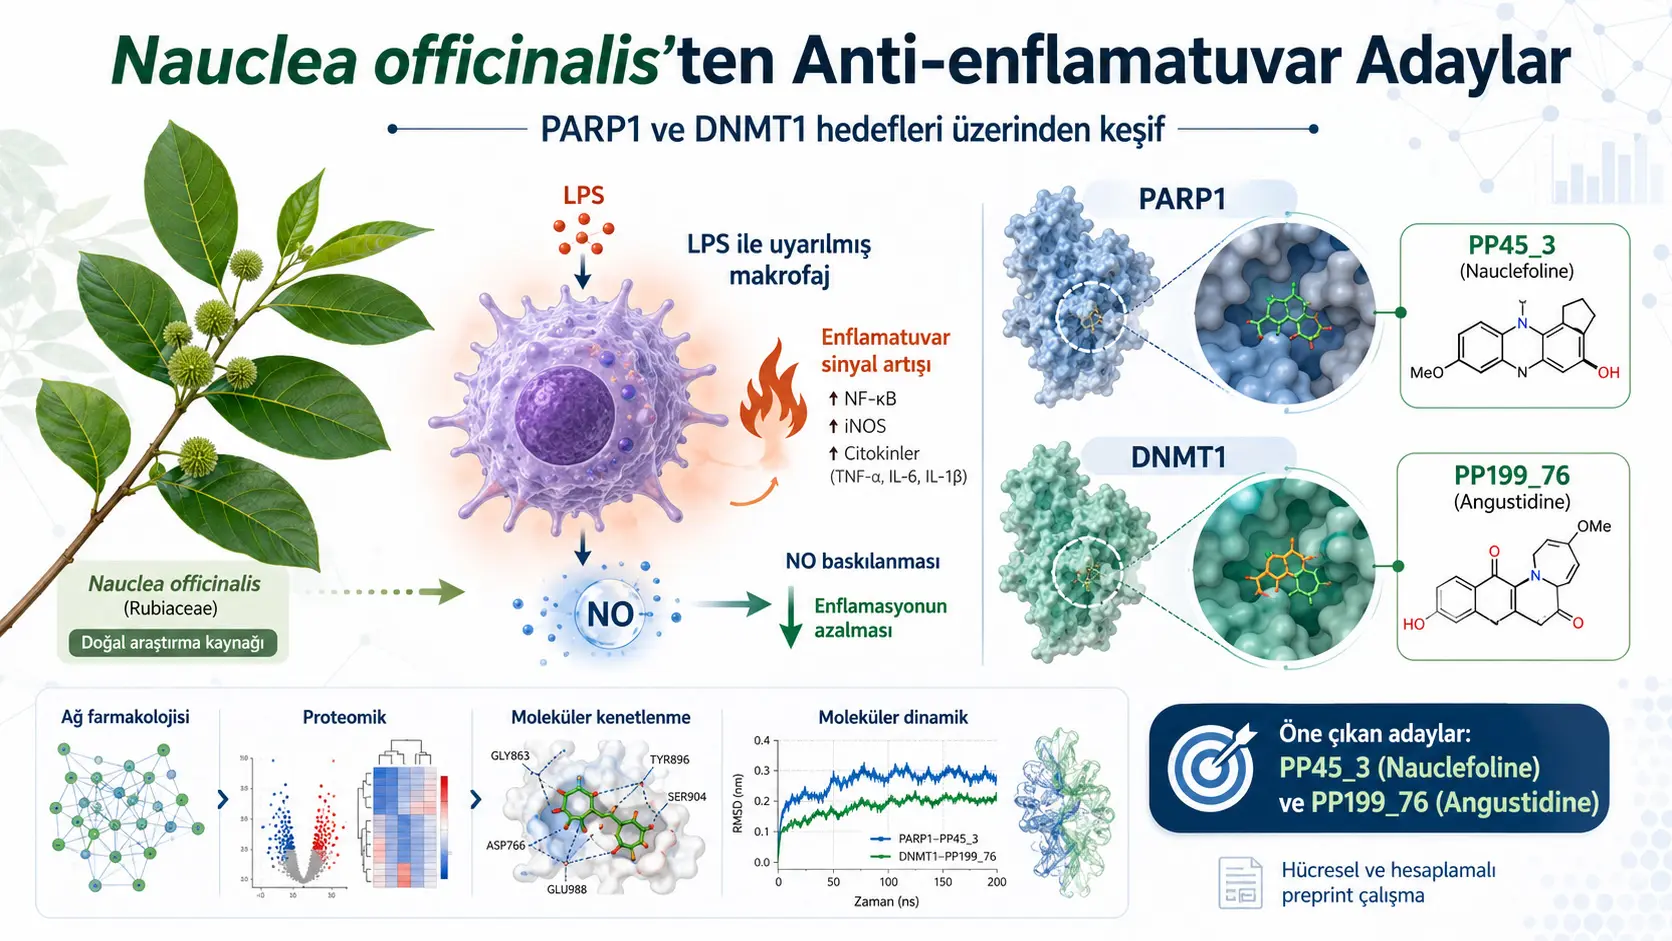
bu çalışma, geleneksel Çin tıbbında istifadə olunan Nauclea officinalis bitkisinin anti-enflamatuvar etkisinden hangi kimyasal komponentlərin sorumlu ola biləcəyini və bu komponentlərin hücre içinde hangi proteinlerle ilişkili ola biləcəyini araşdırır. Tədqiqatçılar tək bir analiz üsuluna dayanmak yerine şəbəkə farmakologiyası, etiketsiz nicel proteomika, zülal-zülal qarşılıqlı təsir analizi, molekulyar dokinq, molekulyar dinamika simulyasiyası, MM/PBSA bağlanma sərbəst enerjisi hesaplamaları və hüceyrə kulturası təcrübələrini bir araya getiren çoxmərhələli bir skrininq sistemi kurmuştur.
Literatürden derlenen 279 N. officinalis komponenti arasından dərmanabənzərlik meyarlarını karşılayan 210 komponent üçün 980 ehtimal olunan zülal hədəfi tahmin edilmiştir. İnflamasyonla ilişkilendirilen 3.084 xəstəlik hədəfiyle yapılan karşılaştırmada 331 ortaq hədəf tapılmışdır. Ağ analizleri PARP1, DNMT1, MAPK1, TNF, EGFR, STAT3 və TLR4 kimi proteinleri yüksək bağlantılı düğümler olaraq göstərmişdir. LPS ilə inflamasyon oluşturulan RAW264.7 fare makrofajlarında gerçekleştirilen proteomika analiz ise N. officinalis özütünün çox sayıda proteinin səviyyəsini değiştirdiğini ortaya koymuş; şəbəkə farmakologiyası ilə proteomika nəticələrın kesişiminden PARP1 və DNMT1 iki əsas potansiyel hədəf olaraq seçilmişdir.
Yapısal sanal tarama sonucunda PARP1 üçün PP45_3 kodlu Nauclefoline, DNMT1 üçün ise PP199_76 kodlu Angustidine önə çıxarılmışdır. çalışmada PP45_3–PARP1 kompleksi üçün bağlanma sərbəst enerjisi −23,65 ± 4,99 kcal/mol, PP199_76–DNMT1 kompleksi üçün −24,23 ± 4,83 kcal/mol olaraq bildirilmişdir. LPS ilə uyarılmış makrofajlarda azot oksidi üretiminin baskılanmasına dayanan deneylerde PP45_3 üçün IC50 14,3 µM, PP199_76 üçün ise 9,3 µM olaraq hesablanmışdır.
bu nəticələr iki molekülü anti-enflamatuvar dərman olaraq sübut etmir. çalışma yalnız tək bir fare makrofaj hücre hattında, tək bir inflamasyon modeli və böyük ölçüde azot oksidi üretimine dayanan bir biyolojik okuma kullanmıştır. PARP1 və DNMT1 ilə birbaşa biokimyəvi hədəf etkileşimi, ferment inhibisiyası, genetik doğrulama, hayvan deneyi, insan təhlükəsizliyi və ya klinik effektivlik gösterilmemiştir. Ayrıca çalışma hakem değerlendirmesinden geçmemiş bir preprintdir.
çalışmanın əsas problemi nedir?
İnflamasyon, toxumanun enfeksiyon, toksin, travma və ya başka zararlı uyaranlara karşı geliştirdiği savunma yanıtıdır. Kısa süreli və kontrollü olduğunda koruyucu ola bilər; lakin aşırı, yetersiz və ya uzun süreli hale geldiğinde toxuma hasarının və xəstəlik ilerlemesinin bir parçasına dönüşebilir. çalışmanın çıkış noktası, yaygın istifadə olunan anti-enflamatuvar dərmanların etkili olmalarına karşın gastrointestinal, kardiyovasküler, renal və hepatik yan etkilerle ilişkilendirilebilmesi və bu səbəbdən doğal kaynaklı yeni adaylara ihtiyaç duyulmasıdır.
Nauclea officinalis, Çin’de “Dan Mu” adıyla bilinen və geleneksel olaraq istifadə olunan Rubiaceae familyasına ait bir bitkidir. Önceki araştırmalar bu bitkinin ham özütünün LPS ilə uyarılmış makrofajlarda azot oksidi, TNF-α və IL-6 kimi inflamatuvar aracıların üretimini azaltabildiğini; NF-κB sinyal yolundaki IκB-α və p65 proteinlerinin fosforilasyonunu baskılayabildiğini bildirmiştir. bununla birlikdə ham özüt, çox sayıda kimyasalın birlikdə bulunduğu karmaşık bir karışımdır. Ham özütün etkili olması, hangi komponentin hangi proteine bağlandığını və ya hangi moleküler mexanizmnın əsas olduğunu tek başına göstermez.
Araştırmanın cevaplamaya çalıştığı ana soru bu səbəbdən belədir: N. officinalis içindeki yüzlerce kimyasal komponent arasından anti-enflamatuvar etkiye katkıda bulunabilecek belirli moleküller və bunların olası protein hədəfləri sistematik biçimde belirlenebilir mi?
Literatürdeki boşluk
çalışmaya görə daha əvvəl N. officinalis ham özütü və Strictosamide kimi sınırlı sayıdaki komponent üzerinde anti-enflamatuvar araştırmalar yapılmıştır. lakin bitkinin kimyasal çeşitliliğini, xəstəlikla ilişkili protein ağlarını, hücresel proteom değişikliklerini və moleküler bağlanma modellerini eyni araştırma çerçevesinde birleştiren bir “komponent–hədəf” haritası bulunmamaktadır.
bu boşluk iki mühüm sorun doğurmaktadır:
- Bir ham özütte gözlenen etkinin hangi saf moleküllerden kaynaklandığı kesin olaraq bilinmemektedir.
- Aktif görünen moleküllerin hücre içinde birbaşa və ya dolaylı olaraq hangi proteinlerle ilişkili olduğu gösterilememektedir.
Tədqiqatçılar bu iki sorunu çözmek üçün əvvəl geniş bir aday havuzu oluşturmuş, ardından hər aşamada aday sayısını azaltan bir eleme düzeni kurmuştur. çalışmanın Şekil 1’de verilen iş akışı; ham özütün hücresel doğrulanması, şəbəkə farmakologiyası, proteomika, sanal tarama və saf bileşiklerin hücresel test edilmesi olmak üzere beş ana basamaktan oluşmaktadır.
279 komponentden başlayan kimyasal tarama
Tədqiqatçılar PubMed, Web of Science, CNKI və VIP kimi veri kaynaklarında Nisan 2025’e kadar yayımlanmış N. officinalis çalışmalarını taramış və 279 kimyasal komponentden oluşan bir kütüphane hazırlamıştır. bu komponentlərin:
- 199’u əsas bir derleme çalışmasından alınmış və “PP199_” önekiyle,
- 45’i başka bir kapsamlı çalışmadan alınmış və “PP45_” önekiyle,
- 35’i ise diğer yayınlardan alınmış və “PP35_” önekiyle
kodlanmıştır. bu kodlar moleküllerin kimyasal adı değil, araştırma sırasında istifadə olunan kütüphane kimlikleridir.
SwissADME üzerinden yapılan dərmanabənzərlik taramasında yüksək gastrointestinal emilim öngörüsü, 0,55’in üzerinde biyoyararlanım değeri və Lipinski, Veber, Ghose, Muegge və Egan filtrelerine uygunluk aranmıştır. Ayrıca çox sayıda analizde yanlış pozitif nəticə verebilen pan-assay interference compounds, yani PAINS yapıları elenmiştir. Tekrarlanan kayıtlar da çıkarıldığında 210 komponent hədəf tahminine alınmıştır.
bu filtreler bir molekülün insanlarda etkili, güvenli və ya klinik olaraq kullanılabilir olduğunu sübut etmir. yalnız kimyasal xüsusiləri bakımından dərman geliştirme açısından daha elverişli görünen adayları önceliklendirmeye yarar.
şəbəkə farmakologiyası: Bitki komponentlərinden protein ağına
SwissTargetPrediction ilə 210 komponent üçün olası protein hədəfləri tahmin edilmiş və olasılık puanı 0,1’in altında kalan hədəflər dışlanmıştır. nəticəta 980 ehtimal olunan zülal hədəfi əldə edilmiştir.
xəstəlikla ilişkili hədəflər GeneCards, Therapeutic Target Database və OMIM kaynaklarından toplanmıştır. Yöntem bölümünde xəstəlik aramasının genel “inflamasyon” teriminden ziyade, temsili inflamatuvar durum olaraq “pneumonia”, yani pnömoni üzerinden yapıldığı belirtilmektedir. bu arama 3.084 xəstəlik hədəfi üretmiştir. Bitki komponenti hədəfləriyle xəstəlik hədəfləri karşılaştırıldığında 331 ortak protein tapılmışdır.
Şekil 2’deki Venn diyagramı bu kesişimi gösterir. böyük xəstəlik kümesinde yalnız xəstəlik verilerinde bulunan 2.753 hədəf, bitki tarafında yalnız N. officinalis komponentləriyle ilişkilendirilen 649 hədəf və ortada iki grubun ortak olduğu 331 hədəf yer almaktadır. bu ortaklık, 331 proteinin gerçekten müalicə hədəfi olduğunu sübut etmir; yalnız hem xəstəlik veri tabanlarında hem de kimyasal hədəf tahminlerinde karşılaşılan adayları gösterir.
Zenginleştirme analizleri ne anlattı?
331 ortaq hədəf üzerinde Gene Ontology, KEGG və Reactome zenginleştirme analizleri gerçekleştirilmiştir. Gene Ontology analizinde üç əsas kategori incələnmişdir:
- Biyolojik süreçler: Makrofaj aktivasyonu, TNF sinyali, inflamatuvar yanıtın pozitif düzenlenmesi və LPS’ye yanıt.
- Hücresel komponentlər: Hücre dışı alan, reseptör kompleksleri və bağışıklıkla ilişkili hücresel yapılar.
- Moleküler işlevler: LPS bağışıklık reseptörü aktivitesi, sitokin bağlanması və çeşitli sinyal proteinleriyle etkileşim.
KEGG və Reactome analizleri TNF, NF-κB, Toll-benzeri reseptör, IL-17, doğal bağışıklık və inflammazom yollarının öne çıktığını göstərmişdir. bu nəticə, N. officinalis komponentlərinin tək bir proteinden ziyade birbirine bağlı bir inflamasyon ağıyla ilişkili olabileceği hipotezini desteklemektedir.
Protein-protein etkileşim ağı içinde MAPK1, TNF, PARP1, DNMT1, EGFR, STAT3 və TLR4 kimi proteinler 30’un üzerinde bağlantı derecesine sahip merkez düğümler olaraq belirlenmiştir. MCODE algoritması, puanı 3,5’in üzerinde olan beş alt ağ və toplam 112 çekirdek hədəf seçmiştir. lakin ağdaki yüksək bağlantı derecesi, bir proteinin mutlaka birbaşa dərman hədəfi olduğu anlamına gelmez. yüksək dereceli proteinler biyolojik ağlarda çox sayıda süreçle ilişkili oldukları üçün de öne çıkabilir.
Ham özütün hüceyrə kulturasındeki etkisi
Deneysel modelde RAW264.7 fare makrofajları istifadə edilmişdir. Hücrelere 1 µg/mL lipopolisakkarit, yani LPS uygulanmış və 24 saat boyunca inflamatuvar yanıt oluşturulmuştur. LPS, xüsusilə Gram-negatif bakterilerin dış zarında bulunan bir komponentdir və laboratuvar mühitında makrofajların inflamatuvar sinyal yollarını uyarmak üçün yaygın biçimde kullanılır.
Ham özütün hücre canlılığı üzerindeki etkisi CCK8 testiyle qiymətləndirilmişdir. Tədqiqatçılar sonraki deneylerde güçlü inflamasyon baskılanması ilə aşağı sitotoksisite arasında denge kurmak amacıyla 100 µg/mL ham özüt konsantrasyonunu seçmiştir.
Şekil 3A’da konsantrasyon yükseldikçe hücre canlılığının azalma eğilimi görülmektedir. bununla birlikdə şekil üzerindeki istatistik işaretleri ilə nəticə metni arasında açıklığa kavuşturulması gereken bir uyğunluqsuzluk vardır. mətn, 200 µg/mL’de hücre canlılığının %91,47’ye düştüğünü və farkın anlamlı olduğunu bildirirken; grafikte 200 və 400 µg/mL dəyərləri “ns”, 600 µg/mL “*”, 800 µg/mL ise “***” olaraq gösterilmektedir. bu makalede iki sunumdan biri tercih edilerek düzeltilmemiş, çalışmadaki tutarsızlık olduğu kimi belirtilmiştir.
azot oksidi neden ölçüldü?
Makrofajlar LPS ilə uyarıldığında indüklenebilir azot oksidi sentaz üzerinden azot oksidi üretimini artırabilir. çalışmada azot oksidi birbaşa ölçülmemiş; kültür mühitındaki daha kararlı nitrit ürünü Griess reaksiyonu ilə belirlenmiştir. bu səbəbdən grafiklerdeki “nitrit” səviyyəsi, hücrelerin azot oksidi üretiminin dolaylı göstergesi olaraq istifadə edilmişdir.
Ham özüt 12,5 µg/mL’den itibaren LPS ilə yükselen nitrit səviyyəsini istatistiksel olaraq azaltmıştır. Bildirilen anlamlılık düzeyleri belədir:
- 12,5 µg/mL: p < 0,05
- 25 µg/mL: p < 0,05
- 50 µg/mL: p < 0,01
- 100 µg/mL: p < 0,0001
Şekil 3B’de LPS grubunun nitrit səviyyəsinin yaklaşık 20 birim civarına yükseldiği, ham özüt dozu arttıkça bu değerin kademeli biçimde azaldığı görülmektedir. Tədqiqatçılar 100 µg/mL’yi sonraki proteomika deneyler üçün çalışma konsantrasyonu olaraq belirlemiştir.
bu nəticə yalnız LPS ilə uyarılmış RAW264.7 hücrelerinde nitrit üretiminin azaldığını göstermektedir. İnsanlardaki inflamatuvar xəstəlikların müalicə edildiğini, bağışıklık sisteminin genel olaraq baskılandığını və ya klinik fayda sağlandığını göstermez.
proteomika analiz: Binlerce proteinin birlikdə izlenmesi
Ham özütün hücrede hangi proteinleri değiştirdiğini belirlemek üçün üç grup karşılaştırılmıştır:
- İşlem uygulanmayan kontrol grubu,
- 1 µg/mL LPS ilə oluşturulan inflamasyon grubu,
- 1 µg/mL LPS və 100 µg/mL N. officinalis özütü verilen müalicə grubu.
Proteinler basınç döngüsü teknolojisiyle parçalanmış, Lys-C və tripsin kullanılarak peptitlere ayrılmış və UltiMate 3000–FAIMS–Orbitrap Exploris 480 LC–MS sistemiyle analiz edilmiştir. çalışmada hər grupta altı paralel örnek bulunduğu və yaklaşık 4.300–4.600 proteinin tanımlandığı belirtilmektedir.
Ham verilerin işlenmesinde %50’den fazla eksik değere sahip proteinler çıkarılmış, kalan eksik değerler medyanla tamamlanmış, limma paketiyle kantil normalizasyonu yapılmış və bolluk dəyərləri log2 dönüşümüne tabi tutulmuştur. Diferansiyel proteinler üçün metinde düzeltilmiş p değerinin 0,05’in altında və mutlak log2 kat değişiminin 1,2’nin üzerinde olması eşik olaraq verilmişdir.
Kat değişiminin mantığını açıklamak üçün istifadə olunan əsas ilişki belədir; bu denklem çalışmada açık biçimde yazılmamış, yöntemin anlaşılması üçün burada verilmişdir:
\[ \log_2 FC = \log_2 \left( \frac{\text{Grup A orta protein bolluğu}}{\text{Grup B orta protein bolluğu}} \right) \]
Burada FC, “fold change” yani kat değişimidir. Pozitif log2FC bir proteinin ilk grupta daha yüksək, negatif dəyər ise daha aşağı olduğunu gösterir.
çalışmanın yöntem metni “|log2FC| > 1,2” ifadesini kullanırken Şekil 4 açıklamasında “FC = 1,2” yazılması və tartışma bölümünde DNMT1 üçün 1,4 və 1,24 kimi doğrusal FC değerlerinin verilmesi terminolojik bir qeyri-müəyyənlik oluşturmaktadır. Log2FC ilə doğrusal FC eyni ölçü deyildir. bu səbəbdən istifadə olunan kesin diferansiyel protein eşiğinin hakemli sürümde açıklığa kavuşturulması gerekir.
proteomika grafiklerin anlattıkları
Şekil 4A’daki əsas komponent analizi, kontrol, inflamasyon və müalicə örneklerinin proteom profillerinin ayrı kümeler oluşturduğunu göstermektedir. PC1 toplam varyansın %25,6’sını, PC2 ise %15,7’sini açıklamaktadır. Üç grubun ayrışması, LPS uygulamasının və ham özüt müalicəsinin protein örüntüsünde ölçülebilir değişiklikler oluşturduğunu desteklemektedir.
Şekil 4B’de üç grupta da benzer sayıda, yaklaşık 4.300–4.600 protein tanımlandığı görülmektedir. bu, gruplar arasındaki ayrımın yalnız bir grupta çox daha az protein ölçülməsindən kaynaklanmadığını düşündürmektedir.
İnflamasyon grubu kontrol grubuyla karşılaştırıldığında 1.288 fərqli ifade edilen protein belirlenmiştir. müalicə grubu inflamasyon grubuyla karşılaştırıldığında 712 protein değişmiştir. Venn diyagramında bu iki karşılaştırmanın 258 ortak diferansiyel proteini bulunduğu gösterilmektedir. Diyagramda ayrıca inflamasyon–kontrol karşılaştırmasına özgü 1.030, müalicə–inflamasyon karşılaştırmasına özgü 454 protein yer almaktadır.
Volkan grafiklerinde yatay eksen protein bolluğundaki değişimi, dikey eksen ise istatistiksel anlamlılığı temsil etmektedir. Grafiğin sağında kalan noktalar artan, solunda kalan noktalar azalan proteinleri göstermektedir. bu grafikler tek tek proteinlerin biyolojik önemini sübut etmir; değişimin büyüklüğü və istatistiksel desteği hakkında bir genel görünüm sağlar.
müalicə və inflamasyon grupları arasındaki fərqli proteinler LPS yanıtı, sitokin aracılı sinyal, doğal bağışıklık, NF-κB sinyali, eikosanoid sentezi və kompleman sistemi kimi süreçlerde zenginleşmiştir. Hücresel komponentlər arasında lipid damlacıkları və mitokondri matriksi; moleküler işlevler arasında NADPH və NF-κB bağlanması öne çıkmıştır.
PARP1 və DNMT1 nasıl seçildi?
proteomika diferansiyel proteinler üzerinde kurulan protein-protein etkileşim ağında MCODE puanı 5,882 olan və 18 proteinden oluşan en yüksək puanlı modül seçilmişdir. bu 18 protein, şəbəkə farmakologiyasınin oluşturduğu 112 çekirdek hədəfle karşılaştırılmıştır. İki listenin kesişiminde yalnız PARP1 və DNMT1 kalmıştır.
PARP1, poli(ADP-riboz) polimeraz 1 proteinidir. çalışmada DNA hasarı yanıtı, proinflamatuvar gen ifadesi və mitokondriyle ilişkili hücre ölümü süreçleriyle bağlantısı üzerinden tartışılmıştır.
DNMT1, DNA sitozin-5-metiltransferaz 1 proteinidir. DNA metilasyon örüntülerinin korunmasında rol alır. çalışma, daha əvvəl DNMT1–PPAR-γ ekseni ilə makrofajların proinflamatuvar fenotipe yönelmesi arasında ilişki bildiren araştırmalara atıfta bulunmaktadır.
proteomika verilere görə DNMT1 inflamasyon grubunda kontrole kıyasla yükselmiş, N. officinalis müalicəsinden sonra düşmüştür. Tartışma bölümünde bu değişimler sırasıyla FC = 1,4 və FC = 1,24 olaraq belirtilmiştir. PARP1’in ise müalicə grubunda inflamasyon grubuna görə FC = 1,3 səviyyəsinde azaldığı bildirilmişdir. lakin bu FC değerlerinin yön işaretleri və yöntem bölümündeki log2FC eşiğiyle ilişkisi metinde yeterince açık deyildir.
bu aşamada PARP1 və DNMT1 “doğrulanmış birbaşa hədəflər” değil, şəbəkə farmakologiyası ilə proteomika verilerin kesişiminden belirlenen potansiyel hədəflərdir. Protein bolluğunun müalicəyle değişmesi, bitki komponentinin o proteine birbaşa bağlandığını göstermez.
İnsan və fare protein yapıları neden karşılaştırıldı?
şəbəkə farmakologiyası insan xəstəlik hədəflərine dayanırken hücre təcrübələri fare kökenli RAW264.7 hücrelerinde gerçekleştirilmiştir. İnsan və fare proteinleri benzer olsa da bağlanma ceplerindeki yapısal farklılıklar sanal tarama nəticələrını etkileyebilir. Tədqiqatçılar bu səbəbdən kullanacakları yapıları geriye dönük molekulyar dokinqyle sınamıştır.
DNMT1 üçün insan yapısı PDB 6X9J, fare yapısı PDB 4DA4 olaraq alınmıştır. Omurga RMSD değeri 2,71 Å bulunmuş və iki yapı arasında dikkate dəyər bir geometrik farklılık olduğu belirtilmiştir. Aktif və yalancı bileşiklerden oluşan sınama kümesinde:
- Fare DNMT1 yapısı üçün AUC 0,77 və logAUC 0,17,
- İnsan DNMT1 yapısı üçün AUC 0,72 və logAUC 0,03
əldə edilmiştir. xüsusilə erken sıralardaki aktif bileşikleri zenginleştirme performansını temsil eden logAUC nedeniyle fare DNMT1 yapısı seçilmişdir.
PARP1 üçün insan kristal yapısı PDB 7AAC istifadə edilmişdir. Deneysel fare PARP1 yapısı bulunmadığından bir homoloji modeli və AlphaFold2 tahmini qiymətləndirilmişdir. İnsan yapısıyla fare AlphaFold2 modeli arasındaki RMSD 0,89 Å, insan yapısıyla homoloji modeli arasındaki RMSD 0,06 Å olaraq verilmişdir. Üç yapının AUC dəyərləri birbirine yakın bulunmuş; deneysel doğrulama fare hücrelerinde yapıldığı üçün fare homoloji modeli tercih edilmiştir.
RMSD və RMSF grafiklerini nasıl okumak gerekir?
molekulyar dinamika simulyasiyasında RMSD, bir protein və ya ligandın zaman içinde başlangıç ya da referans yapıya görə ne kadar yer değiştirdiğini özetler. çalışmanın kullandığı ölçütün mantığını açıklamak üçün əsas RMSD ilişkisi belədir; denklem makalede açık biçimde verilmemiştir:
\[ \mathrm{RMSD}(t) = \sqrt{\frac{1}{N}\sum_{i=1}^{N}\left\|\mathbf{r}_i(t)-\mathbf{r}_i^{ref}\right\|^2} \]
Burada:
- N, karşılaştırılan atom sayısını,
- ri(t), i numaralı atomun t anındaki konumunu,
- riref, eyni atomun referans konumunu
ifade eder. RMSD’nin belirli bir düzeyde dalgalanarak plato oluşturması sistemin dengeye yaklaşmış ola biləcəyini düşündürür. lakin aşağı RMSD tek başına doğru bağlanma, yüksək afinite və ya biyolojik inhibisyon kanıtı deyildir.
RMSF ise hər amino asit kalıntısının simülasyon boyunca ne kadar hareketli olduğunu gösterir. yüksək RMSF dəyərləri proteinin daha esnek bölgelerine, aşağı değerler daha kararlı bölgelere qarşılıq gelir. Şekil 5’teki 100 nanosaniyelik apo simülasyonlar, seçilen fare DNMT1 və fare PARP1 homoloji modeli yapılarının genel olaraq kararlı bir seyir gösterdiğini və belirli bölgelerde yerel esneklik bulunduğunu ortaya koymaktadır.
PARP1 üçün PP45_3 nasıl seçildi?
279 komponent PARP1 yapısına karşı QVina2 ilə taranmıştır. Bağlanma puanı −11 kcal/mol’den daha aşağı, yani hesaplamaya görə daha elverişli olan 110 molekül elle incələnmişdir. Gerçekçi görünmeyen bağlanma biçimleri çıkarılmış və uygun hidrojen bağları gösteren 10 bileşik seçilmişdir.
bu 10 protein–ligand kompleksi üçün 100 nanosaniyelik molekulyar dinamika simulyasiyası yapılmıştır. Protein omurga RMSD grafiklerinde komplekslerin böyük hissəsinin apo PARP1’e benzer kararlılık gösterdiği bildirilmişdir. Ligandın protein omurgasına görə RMSD grafiğinde PP45_3, PP199_188 və PP199_189 kimi bazı bileşiklerin yaklaşık 0,2 nm çmərhələsinde daha istikrarlı kaldığı görülmüştür. Sistemlerin xüsusilə son 40 nanosaniyede kararlı hale geldiği kabul edilmiş və bağlanma sərbəst enerjisi bu bölümden hesablanmışdır.
MM/PBSA yönteminin əsas mantığı, kompleks durumunun enerjisini ayrılmış protein və ligand durumlarıyla karşılaştırmaktır. çalışmada açık denklem verilmemiştir; yöntemi açıklamak üçün genel ilişki şu şekilde gösterilebilir:
\[ \Delta G_{bağlanma} = G_{kompleks} - \left(G_{protein} + G_{ligand}\right) \]
Daha negatif bir ΔG değeri, istifadə olunan hesaplama modeli içinde daha elverişli bağlanmayı temsil eder. bununla birlikdə MM/PBSA yaklaşık bir hesaplama yöntemidir və gerçek deneysel bağlanma afinitesinin yerine geçmez.
PARP1 tablosunda PP45_3 üçün:
- molekulyar dokinq puanı: −12,2 kcal/mol
- bağlanma sərbəst enerjisi: −23,65 ± 4,99 kcal/mol
bildirilmişdir. PP199_69 daha negatif orta değere, −24,58 kcal/mol’e sahip olsa da standart sapması ±19,07 kcal/mol olduğu üçün kararsız kabul edilmiş və sonraki deneylere alınmamıştır. Tədqiqatçılar böylece PP45_3’ü PARP1 üçün öncü aday olaraq seçmiştir.
Metinde bağlanma sərbəst enerjisinin “14 bileşik” üçün yeniden sıralandığı yazılmasına karşın ilgili şekil və tabloda 10 PARP1 adayı gösterilmektedir. bu say farkı çalışmanın açıklığa kavuşturulması gereken iç tutarlılık noktalarından biridir.
DNMT1 üçün PP199_76 nasıl seçildi?
DNMT1 taramasında kenetlenme puanı −10 kcal/mol’den daha aşağı olan en iyi 23 bileşik elle incelenmiş və yedi aday seçilmişdir. bu kompleksler de 100 nanosaniye boyunca simüle edilmiştir.
Protein omurga RMSD değerlerinin çoğu apo proteinden aşağı görünse de ligand RMSD analizi bazı moleküllerin hədəf cebinden uzaklaştığını göstərmişdir. PP199_21, PP199_40 və PP199_105 üçün 1 nm’nin üzerinde hareket gözlenmiştir. Tədqiqatçılar bunu ligandın hədəf cebinden kaçması olaraq yorumlamış və yalnız protein omurgasının kararlı görünmesinin yeterli olmadığını göstərmişdir.
Son 40 nanosaniyelik yörünge üzerinden yapılan bağlanma enerjisi hesaplamasında anlatı metni:
- PP199_76 üçün −24,23 ± 4,83 kcal/mol,
- PP199_31 üçün −25,33 ± 7,38 kcal/mol
değerlerini vermektedir. PP199_31’in daha böyük standart sapma nedeniyle elendiği, PP199_76’nın seçildiği belirtilmiştir.
lakin Tablo 2’de ligand kimlikleri anlatı və Şekil 7 ilə uyuşmamaktadır. Tabloda −24,23 ± 4,83 kcal/mol değeri PP45_3’e, −25,33 ± 7,38 kcal/mol değeri ise PP199_32’ye yazılmıştır. Tablo satırlarının mühüm bölümü PARP1 tablosundaki ligand kimliklerini tekrar etmektedir. buna qarşılıq başlık, özet, nəticə metni və son doğrulama bölümü seçilen DNMT1 adayını PP199_76 olaraq tanımlamaktadır. bu makalede tablo düzeltilmemiştir; preprintte bulunan kimlik uyuşmazlığı açıkça qeydə alınmışdır.
İki öncü bileşiğin kimliği
| Araştırma kodu | Kimyasal ad | CAS numarası | Moleküler formül | Önerilen hədəf |
|---|---|---|---|---|
| PP45_3 | Nauclefoline | 96400-51-0 | C19H16N2O3 | PARP1 |
| PP199_76 | Angustidine | 40217-50-3 | C19H15N3O | DNMT1 |
Bitkisel materyalin hazırlanmasında 30 kg havada kurutulmuş gövde və yaprak istifadə edilmişdir. Materyal oda sıcaklığında %85 etanolle üç kez, hər seferinde bir hafta boyunca ekstrakte edilmiştir. Ham özüt su içinde süspanse edilmiş; petrol eteri və etil asetatla fraksiyonlara ayrılmıştır. Silika jel, RP-18, Sephadex LH-20 və yarı preparatif HPLC basamaklarının ardından 18,3 mg PP199_76 və 39,2 mg PP45_3 əldə edilmiştir.
çalışmanın girişinde geleneksel drog kuru gövde və kök olaraq tanımlanırken deney bölümünde gövde və yaprakların kullanıldığı belirtilmektedir. Bitkinin istifadə olunan kısmı kimyasal profili etkileyebileceğinden bu farkın açıklanması gerekir.
Öngörülen protein–ligand bağlanmaları
Son 100 nanosaniyelik simülasyonların temsili yapıları incelendiğinde:
- PP45_3’ün PARP1 aktif bölgesinde E762, N766 və S863 kalıntılarıyla üç hidrojen bağı oluşturduğu,
- PP199_76’nın DNMT1 aktif bölgesinde E1269 və R1315 kalıntılarıyla iki hidrojen bağı oluşturduğu
bildirilmişdir. Şekil 8B bu bağları sarı çizgilerle göstermektedir. bu modeller, moleküllerin hədəf ceplerinde nasıl konumlanabileceğine ilişkin yapısal bir hipotez sağlar. lakin modelde hidrojen bağı görülmesi, gerçek biyolojik mühitda birbaşa bağlanmanın və ya ferment inhibisiyasınun gerçekleştiğini sübut etmir.
Saf bileşiklerin hücresel anti-enflamatuvar nəticələrı
PP45_3 və PP199_76, LPS ilə uyarılmış RAW264.7 makrofajlarında Griess testi kullanılarak qiymətləndirilmişdir. hər iki molekül de doz arttıkça nitrit üretimini azaltmıştır. çalışmada hesaplanan yarı maksimum inhibitör konsantrasyonlar belədir:
| Bileşik | Önerilen hədəf | IC50 | Hücresel okuma |
|---|---|---|---|
| PP45_3 / Nauclefoline | PARP1 | 14,3 µM | LPS ilə yükselen nitrit üretiminin baskılanması |
| PP199_76 / Angustidine | DNMT1 | 9,3 µM | LPS ilə yükselen nitrit üretiminin baskılanması |
| N. officinalis ham özütü | çox komponentli karışım | 112,02 µg/mL | LPS ilə yükselen nitrit üretiminin baskılanması |
IC50, bir biyolojik yanıtın başlangıç ilə en yüksək inhibisyon arasındaki yarısına ulaşılan konsantrasyondur. Daha aşağı IC50 değeri eyni deney sistemi və eyni konsantrasyon birimi içinde daha yüksək görünür güce işaret eder.
Burada mühüm bir karşılaştırma sorunu bulunmaktadır. Saf bileşiklerin IC50 dəyərləri µM, ham özütün değeri ise µg/mL cinsinden verilmişdir. Ayrıca ham özüt çox sayıda molekülün karışımıdır. bu səbəbdən saf bileşiklerle ham özütün “kaç kat daha güçlü” olduğu birbaşa bu değerlerden hesaplanamaz.
Yöntem bölümünde və Şekil 8 eksenlerinde saf bileşiklerin uygulama konsantrasyonları 6,25–100 µg/mL olaraq gösterilirken nəticələrda IC50 dəyərləri µM olaraq sunulmuştur. Kütlesel konsantrasyondan molar konsantrasyona dönüşüm yapılmış ola bilər; lakin dönüşüm yöntemi və doz–yanıt hesabının ayrıntıları metinde verilmemiştir. bu birim farkının hakemli sürümde açıklanması gerekir.
çalışmanın güçlü yönleri
- çoxmərhələli yaklaşım: Tek başına molekulyar dokinqye güvenilmemiş; şəbəkə farmakologiyası, proteomika, geriye dönük yapı değerlendirmesi, moleküler dinamik, bağlanma enerjisi və hücre deneyi bir araya getirilmiştir.
- Geniş kimyasal kütüphane: Literatürde bildirilen 279 bileşik sistematik olaraq derlenmiştir.
- Ham özüt ilə saf molekül arasında bağlantı kurulması: əvvəl özütün hücre üzerindeki etkisi gösterilmiş, ardından iki saf bileşik izole edilerek test edilmiştir.
- İnsan–fare yapı farkının dikkate alınması: Hücre modelinin fare kökenli olması nedeniyle protein yapılarının sanal tarama performansı ayrıca qiymətləndirilmişdir.
- Kararsız adayların elenmesi: yalnız en negatif kenetlenme puanları seçilmemiş; böyük RMSD və ya yüksək enerji belirsizliği gösteren adaylar dışlanmıştır.
- Kimyasal kimlik və izolasyon bilgisinin verilmesi: Öncü moleküllerin adları, CAS numaraları, moleküler formülleri və izolasyon süreçleri raporlanmıştır.
çalışmanın sınırlılıkları
- Hakemlik yoktur: Makale bir preprintdir və bağımsız rəyçi qiymətləndirməsindən keçməmişdir.
- Tek hücre modeli istifadə edilmişdir: Bulgular yalnız LPS ilə uyarılmış RAW264.7 fare makrofajlarına dayanmaktadır.
- Tek əsas inflamasyon göstergesi vardır: Saf bileşiklerin deneysel değerlendirmesi ağırlıklı olaraq nitrit üretimine dayanmıştır.
- Saf bileşik sitotoksisitesi açıkça gösterilmemiştir: Ham özüt üçün CCK8 analizi verilmiş, lakin PP45_3 və PP199_76 üçün eyni vaxtda hücre canlılığı nəticələrı sunulmamıştır. Nitrit azalmasının hücre sayısından bağımsız olduğunun ayrıca gösterilmesi gerekir.
- birbaşa hədəf doğrulaması yoktur: PARP1 və DNMT1 enzim aktivitesi, saf protein bağlanması, termal kayma, yüzey plazmon rezonansı, izotermal titrasyon kalorimetrisi və ya benzeri yöntemlerle doğrulanmamıştır.
- genetik doğrulama yoktur: PARP1 və ya DNMT1 susturma, aşırı ifade ya da kurtarma təcrübələriyle bileşik etkisinin bu hədəfləre bağımlı olduğu gösterilmemiştir.
- Hayvan deneyi yoktur: Farmakokinetik, biyoyararlanım, doz, toksisite və organizma səviyyəsindeki anti-enflamatuvar etki değerlendirilmemiştir.
- Klinik veri yoktur: İnsanlarda güvenlilik və ya etkinlik hakkında nəticə çıkarılamaz.
- xəstəlik hədəflərinin kapsamı sınırlıdır: Genel inflamasyon yerine pnömoni hədəflərinin temsili inflamatuvar veri kümesi olaraq kullanılması başka inflamasyon türlerine genellenebilirliği sınırlayabilir.
- çox komponentli sinerji incelenmemiştir: Ham özütteki bileşiklerin birbirini güçlendirmesi, zayıflatması və ya metabolizmayı değiştirmesi değerlendirilmemiştir.
- mətn və tablolar arasında tutarsızlıklar vardır: DNMT1 adaylarının kimlikleri, proteomika eşik tanımları, sitotoksisite istatistikleri və konsantrasyon birimlerinde açıklık gerektiren farklılıklar bulunmaktadır.
çalışma ne söylüyor?
- N. officinalis ham özütü, belirlenen hücre modeli və doz aralığında LPS ilə yükselen nitrit üretimini azaltmıştır.
- Ham özüt müalicəsi RAW264.7 hücrelerinin proteom profilinde belirgin değişikliklerle ilişkilendirilmiştir.
- şəbəkə farmakologiyası və proteomika kesişimi PARP1 ilə DNMT1’i potansiyel hədəflər olaraq önceliklendirmiştir.
- Hesaplamalı modeller PP45_3’ün PARP1’e, PP199_76’nın DNMT1’e bağlanabilecek yapısal xüsusilər taşıdığını öngörmüştür.
- İki saf bileşik LPS ilə uyarılmış makrofajlarda nitrit üretimini konsantrasyona bağlı biçimde azaltmıştır.
çalışma ne söylemiyor?
- PP45_3 və ya PP199_76’nın insanlarda anti-enflamatuvar dərman olduğunu göstərmir.
- bu bileşiklerin PARP1 və DNMT1’i birbaşa inhibe ettiğini deneysel olaraq sübut etmir.
- Hangi inflamatuvar xəstəliklarda etkili olacağını belirlememektedir.
- Güvenli doz, toksik doz, metabolizma, toxuma dağılımı və ya dərman etkileşimi bilgisi sunmamaktadır.
- Ham bitki ürünlerinin tüketilmesinin eyni etkiyi oluşturacağını göstərmir.
- heyvanlarda və ya insanlarda müalicə, korunma ya da xəstəlik gerilemesi kanıtı sunmamaktadır.
Geçmiş, bugün və gelecek açısından önemi
Geçmişte doğal ürün araştırmaları çoğunlukla ham özütün belirli bir hücresel yanıtı azaltıp azaltmadığına odaklanıyordu. bu çalışma, ham özüt bulgusunu kimyasal kütüphane, protein ağı, proteom və moleküler yapı düzeylerine taşıyarak hangi komponentlərin daha ətraflı incelenmesi gerektiğini belirlemeye çalışmaktadır.
Bugün açısından çalışmanın değeri, yüzlerce doğal bileşiği birbaşa deneysel olaraq test etmek yerine hesaplamalı və omik yöntemlerle daha kiçik bir aday grubuna indirgemesidir. Böylece pahalı və zaman alıcı deneyler, önceliklendirilmiş moleküller üzerinde yoğunlaştırılabilir.
Gelecekte PP45_3 və PP199_76 üçün öncelikle birbaşa protein bağlanma və enzim inhibisyon təcrübələri yapılması gerekir. Ardından hədəf bağımlılığının genetik yöntemlerle gösterilmesi, fərqli insan və hayvan hücrelerinde doğrulama, daha geniş sitokin panelleri, toksisite testleri, farmakokinetik analizler və hayvan inflamasyon modelleri gerekecektir. bu aşamalar başarılı olmadan moleküllerin dərman adayı və ya müalicə seçeneği olaraq değerlendirilmesi erken olacaktır.
Gündelik yaşam açısından araştırma, bitkisel bir özütün birbaşa dərman olaraq kullanılmasını önermekten ziyade doğal kaynakların modern dərman keşfinde nasıl sistematik biçimde incelenebileceğini göstermektedir. Bitkide bulunan yüzlerce komponent əvvəl veri tabanlarıyla süzülmüş, sonra hücresel protein değişimleriyle karşılaştırılmış, ardından atom səviyyəsinde simüle edilmiş və son olaraq hücre deneyine taşınmıştır. bu süreç, geleneksel kullanım bilgisi ilə çağdaş moleküler araştırma arasında bilimsel bir köprü kurma girişimidir.
çalışmanın metodu və nəticələri
Araştırma iş akışı
| Aşama | Uygulanan yöntem | əsas çıktı |
|---|---|---|
| 1. Kimyasal kütüphane | Nisan 2025’e kadar yayımlanmış literatürün taranması | 279 N. officinalis komponenti |
| 2. dərmanabənzərlik | SwissADME və PAINS filtresi | 210 öncelikli komponent |
| 3. hədəf tahmini | SwissTargetPrediction | 980 ehtimal olunan zülal hədəfi |
| 4. xəstəlik hədəfləri | GeneCards, TTD və OMIM; pnömoni temsili sorgusu | 3.084 xəstəlik hədəfi |
| 5. Kesişim | Bitki və xəstəlik hədəflərinin karşılaştırılması | 331 ortaq hədəf |
| 6. Ağ analizi | DAVID, STRING, Cytoscape və MCODE | Beş alt ağ və 112 çekirdek hədəf |
| 7. Ham özüt doğrulaması | CCK8 və Griess testi | 100 µg/mL çalışma konsantrasyonu |
| 8. proteomika | Etiketsiz nicel LC–MS/MS proteomiği | PARP1 və DNMT1 potansiyel hədəfləri |
| 9. Yapı seçimi | Geriye dönük docking, AUC və logAUC | Fare DNMT1 və fare PARP1 homoloji modeli |
| 10. Sanal tarama | QVina2, 100 ns moleküler dinamik və MM/PBSA | PP45_3 və PP199_76 |
| 11. Hücresel doğrulama | LPS–RAW264.7 modelinde Griess testi | IC50: 14,3 µM və 9,3 µM |
hüceyrə kulturası və biyolojik testler
- Hücre hattı: RAW264.7 fare makrofajı
- Kültür mühitı: %10 fetal sığır serumu və %1 penisilin–streptomisin içeren DMEM
- İnkübasyon: 37 °C, %5 CO2
- İnflamasyon uyaranı: 1 µg/mL LPS
- Uyarım süresi: 24 saat
- Hücre canlılığı: CCK8, 450 nm absorbans
- Nitrit analizi: Griess reaksiyonu, 540 nm absorbans
- Şekil açıklamalarına görə grup başına örnek sayı: n = 6
proteomika yöntem
- Hücre parçalama və indirgeme/alkilasyon: Barocycler 2320EXT basınç döngüsü teknolojisi
- Protein sindirimi: Lys-C, ardından tripsin
- Peptit ayırma: C18 kolon, 80 dakikalık LC gradyanı
- Kütle spektrometrisi: FAIMS–Orbitrap Exploris 480
- MS1 tarama aralığı: m/z 350–1.500
- MS1 çözünürlüğü: 60.000
- MS/MS çözünürlüğü: 15.000
- HCD çarpışma enerjisi: %30
- Eksik veri filtresi: %50’den fazla eksik proteinlerin çıkarılması
- Kalan eksikler: medyanla tamamlama
- Normalizasyon: limma kantil normalizasyonu
- İstatistik: doğrusal modeller və ampirik Bayes yaklaşımı
- Metinde verilen diferansiyel protein eşiği: düzeltilmiş p < 0,05 və |log2FC| > 1,2
proteomika bulgular
| Karşılaştırma və ya ölçüm | nəticə |
|---|---|
| hər örnek grubunda tanımlanan protein sayı | Yaklaşık 4.300–4.600 |
| İnflamasyon grubu – Kontrol grubu | 1.288 diferansiyel protein |
| müalicə grubu – İnflamasyon grubu | 712 diferansiyel protein |
| İki karşılaştırmanın ortak proteinleri | 258 protein |
| En yüksək MCODE modülü | Puan 5,882; 18 protein |
| şəbəkə farmakologiyasıyle ortak potansiyel hədəflər | PARP1 və DNMT1 |
Moleküler docking və dinamik parametreleri
- Docking yazılımı: QVina2
- PARP1 exhaustiveness değeri: 12
- DNMT1 exhaustiveness değeri: 36
- Protein hazırlama: su moleküllerinin çıkarılması, polar hidrojen və Kollman yüklerinin eklenmesi
- Ligand geometrisi: RDKit və MMFF94 kuvvet alanı
- Moleküler dinamik: GROMACS 2024.1
- Protein kuvvet alanı: CHARMM36m
- Ligand kuvvet alanı: CGenFF
- Protonasyon durumu: PROPKA, pH 7,4
- Çözücü kutusu: protein–kutu sınırı arasında 1,5 nm mesafe
- Dengeleme: 100 ps NVT və 100 ps NPT
- Üretim simülasyonu: 100 ns
- Enerji kayıt aralığı: 10 ps
- Bağlanma enerjisi: son 40 ns üzerinden gmx_MMPBSA 1.6.3
PARP1 adaylarının hesaplamalı nəticələrı
| Ligand | Docking enerjisi | bağlanma sərbəst enerjisi |
|---|---|---|
| PP45_3 | −12,2 kcal/mol | −23,65 ± 4,99 kcal/mol |
| PP199_7 | −12,0 kcal/mol | −23,38 ± 8,65 kcal/mol |
| PP199_69 | −12,8 kcal/mol | −24,58 ± 19,07 kcal/mol |
| PP199_83 | −12,2 kcal/mol | −17,86 ± 9,85 kcal/mol |
PP199_69’un orta enerjisi daha negatif olmasına rağmen belirsizliğinin çox yüksək olması nedeniyle PP45_3 seçilmişdir.
DNMT1 adayının hesaplamalı sonucu
| Ligand | Anlatı metnindeki bağlanma enerjisi | Değerlendirme |
|---|---|---|
| PP199_76 | −24,23 ± 4,83 kcal/mol | Öncü aday olaraq seçildi |
| PP199_31 | −25,33 ± 7,38 kcal/mol | Daha yüksək standart sapma nedeniyle elendi |
Veri notu: Yukarıdaki değerler nəticə anlatısı və aday seçiminden aktarılmıştır. Preprintteki Tablo 2, bu dəyərləri PP45_3 və PP199_32 kimlikleriyle göstermektedir. Tablo ilə anlatı arasındaki bu uyuşmazlık düzeltilmeden raporlanmıştır.
nəticələrın teknik özeti
| Öncü molekül | Önerilen hədəf | Hidrojen bağı kalıntıları | BFE | Hücresel IC50 |
|---|---|---|---|---|
| Nauclefoline / PP45_3 | PARP1 | E762, N766, S863 | −23,65 ± 4,99 kcal/mol | 14,3 µM |
| Angustidine / PP199_76 | DNMT1 | E1269, R1315 | −24,23 ± 4,83 kcal/mol | 9,3 µM |
bu tablo, çalışmanın aday seçimini özetlemektedir. BFE və hidrojen bağları hesaplamalı nəticələrdır; IC50 dəyərləri ise LPS ilə uyarılmış fare makrofajlarında nitrit üretiminin baskılanmasına dayanmaktadır. bu üç veri türü birlikdə bir adaylık hipotezi oluşturur, fakat birbaşa hədəf inhibisyonunu və ya klinik effektivliyi sübut etmir.
Mənbə və metod qeydi
bu içerik, Tong Wang, Junjie Tong, Jingying Chen, Cong Xie, Yanhui Fu və Changbin Yu tarafından hazırlanan “Discovery of Anti-inflammatory Constituents from Nauclea officinalis Targeting PARP1 and DNMT1” başlıklı çalışmaya dayanmaktadır.
çalışma, SSRN üzerinde elektronik kopyası sunulan bir preprint araştırma makalesidir. Metnin hər sayfasında “This preprint research paper has not been peer reviewed” və “Preprint not peer reviewed” uyarıları bulunmaktadır. çalışma rəyçi qiymətləndirməsindən keçməmişdir. Metinde doğrulanabilir bir DOI, hakemli dergi kabulü və ya nihai yayın bilgisi verilmemiştir.
Araştırma; hüceyrə kulturası deneyi, etiketsiz nicel proteomika, şəbəkə farmakologiyası, zülal-zülal qarşılıqlı təsir analizi, geriye dönük və ileriye dönük moleküler docking, homoloji modelleme, AlphaFold2 yapısı, 100 nanosaniyelik moleküler dinamik simülasyonları və MM/PBSA bağlanma sərbəst enerjisi hesaplamalarını birleştirmektedir.
çalışma klinik araştırma deyildir. Hayvan deneyi, insan deneyi, klinik effektivlik, insan təhlükəsizliyi, farmakokinetik və ya müalicə garantisi sunmamaktadır. PP45_3 və PP199_76 üçün bildirilen anti-enflamatuvar bulgular, LPS ilə uyarılmış RAW264.7 fare makrofajlarında nitrit üretiminin azalmasına dayanmaktadır.
PARP1 və DNMT1 birbaşa biokimyəvi bağlanma və ya enzim inhibisyon təcrübələriyle doğrulanmamıştır. bu proteinler şəbəkə farmakologiyası, proteomika kesişim və bilgisayar modellemesi sonucunda potansiyel hədəflər olaraq belirlenmiştir. Dolayısıyla “PP45_3 PARP1’i, PP199_76 DNMT1’i kesin olaraq inhibe eder” biçiminde bir nəticə kurulamaz.
Preprintte Tablo 2’deki ligand kimlikleri ilə nəticə anlatısı arasında, hücre canlılığı metni ilə Şekil 3’teki istatistik işaretleri arasında, proteomika FC və log2FC ifadelerinde, saf bileşik konsantrasyon birimlerinde və istifadə olunan bitki kısımlarının tanımında bazı iç tutarlılık sorunları bulunmaktadır. bu içerikte söz konusu noktalar düzeltilmemiş, değiştirilmemiş və ya gizlenmemiş; okuyucunun verileri doğru bağlamda değerlendirebilmesi üçün açıkça belirtilmiştir.
bu makale yalnız yüklenen bilimsel çalışmadaki yöntemlere, şekillere, tablolara, sayısal verilere və yazarların yorumlarına dayanılarak hazırlanmıştır. çalışmada bulunmayan klinik, kommersiya və ya müalicə edici iddialar eklenmemiştir.
Şərh yazın
E-poçt ünvanınız yayımlanmayacaq. Məcburi sahələr * ilə işarələnib