

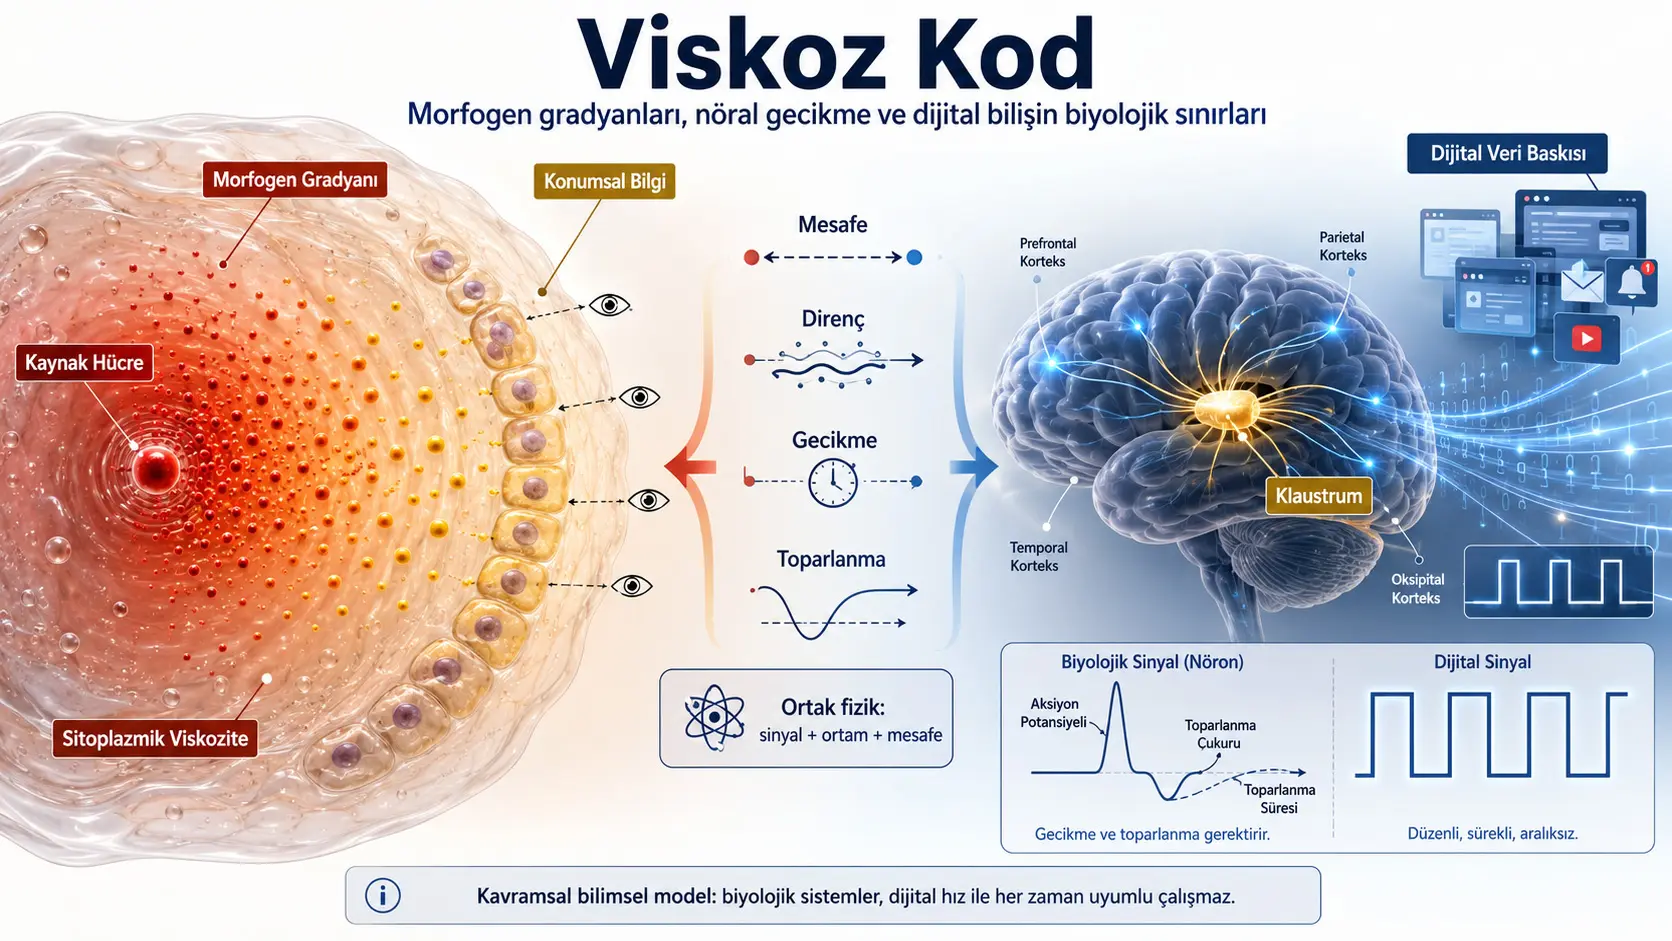
Bir embriondakı hüceyrələr eyni DNT’yı daşıdığı halda necə olur ki biri sinir hüceyrəsinə, digəri sümüyə, bir başqa biri dəriyə çevrilir? Hücre, inkişaf edən bədənin harasında olduğunu nasıl “bilir”? Bu tədqiqat, sözügedən sualın cavabını yalnız genetik ardıcıllıqda deyil, genlərin yaratdığı siqnalların fiziki bir mühit içində yayılma formasında axtarır.
Deborah DeSilets tarafından hazırlanan tədqiqat, Francis Crick’in morfogen difüzyonu və sitoplazmik viskozite üzerine düşüncelerinden hareketle, bioloji məlumatnin bir mühitın direnci, məsafə və zamanlama yoluyla anlam kazandığını savunmaktadır. Bir kaynak hüceyrənin salgıladığı morfogen, ətrafındakı toxumada bərabər şəkildə paylanmır; mənbəyə yaxın yerde yüksək, uzaq bölgələrdə aşağı sıxlıq yaradır. Hüceyrələrin bu sıxlıq farkını oxuması, embriyoda mövqesəl məlumat yaradır.
Məqalə daha sonra bu inkişaf biologiyası modelini insan beynindəki siqnal önövülməsinə daşıyır. Xüsusilə klaustrum adı məlumatlen, çoxsaylı kortikal bölgə ilə qarşılıqlı əlaqə kuran nazik boz maddə quruluşunun, farklı sensor siqnalların zamanlamasını birləşdirən mümkün bir inteqrasiya mərkəzi olduğu fikrini ələ alır.
Tədqiqatnın əsas tezisi, embriondakı morfogen yayılımı ilə beyindeki elektrokimyəvi siqnal iletiminin ortaq fiziki məhdudiyyətlərə malik olmasıdır: Sinyal fiziki bir mühitdan geçer, məsafə səbəbindən gecikir veya zəifləyir, qəbuledici sistemin bərpa müddətinə ehtiyacı var və həddindən artıq davamlı stimullaşdırma sistemin ayıretmə qabiliyyətini poza bilər.
Yazar bu çərçivədən hareketle “rəqəmsal koqnitiv uyumsuzluk” anlayışını irəli sürür. Dijital sistemlər fasiləsiz, çoxkanallı və çok yüksək sürətlə məlumat istehsal edə bildiyi halda bioloji sinir sistemi ion kanalları, neyrotransmitter ehtiyatları, refrakter dövrlər və sınırlı ötürmə sürətləri ilə işləyir. Məqaləye görə rəqəmsal uyaranların sürəti və davamlılığı bioloji sistemin bərpa qabiliyyətini aşdıqda diqqət dağılması, koqnitiv dumanlılıq, sensor bütövlüyün zəifləməsi və sinaptik yorğunluq bənzər nəticələr ortaya çıxa bilər.
Lakin tədqiqat bu etkileri birbaşa insanlarda ölçməmişdir. Dijital ekran kullanımının klaustrumu çökerttiğini, eksitotoksisiteye yol açtığını veya kqəbuledici beyin hasarı oluşturduğunu sübut edən eksperimental məlumat təqdim etmir. Önerilen “viskoz kod”, inkişaf biologiyası, neyroelm və rəqəmsal tasarım arasında qurulan konseptual bir modeldir.
Detaylı Açıklama
Tədqiqatnın temel problemi nedir?
Məqalə iki farklı bilimsel soruyu eyni fiziki çərçivədə bir araya getirmektedir:
- Embriyodaki hüceyrələr bədənin harasında olduklarını nasıl belirler?
- İnsan beyni farklı bölgələrdən gelen siqnalleri zaman içində nasıl bütünleştirir və rəqəmsal uyaran yoğunluğu bu bütünleştirme qabiliyyətini aşabilir mi?
İlk soru inkişaf biologiyasıne, ikinci soru neyroelm və insan-məlumatsayar etkileşimine aittir. Tədqiqatnın özgün iddiası, bu iki problemin yalnız benzer metaforlarla deyil, fiziki mühit, direnç, məsafə, gecikme və bərpa gereksinimi açısından yapısal ortaqlık taşıdığıdır.
Genetik kod neden tek başına bədənin biçimini açıklamaz?
DNT, proteinlerin istehsalı üçün gerekli məlumatyi taşır. Lakin eyni DNT’ya sahip hüceyrələrin farklı dokulara dönüşmesi, yalnız ardıcıllıqdaki sabit məlumatyle açıklanamaz.
Bir hüceyrənin:
- Baş bölgəsinde mi kuyruk bölgəsinde mi olduğunu,
- hansı komşu hüceyrələrle çevrili olduğunu,
- hansı yönde büyümesi gerektiğini,
- hansı gelişim programını etkinleştireceğini belirlemesi gerekir.
Tədqiqat, Francis Crick’in “mövqesəl məlumat” düşüncesine dayanarak hüceyrə kimliğinin yalnız genetik koddan deyil, gen ürünlerinin fiziki uzayda oluşturduğu sıxlıq farklılıklarından doğduğunu anlatmaktadır.
Bu yaklaşımda DNT ayrıntılı bir mimari plan kimi her hüceyrənin kesin koordinatını yazmaz. Bunun yerinə müəyyən hüceyrələrin siqnal üretmesini sağlar; siqnalin çevreye yayılması və fizik yasaları, mekânsal düzeni yaradır.
Morfogen nedir?
Morfogen, inkişaf edən bir toxumada yoğunluğuna asılı olaraq hüceyrələrin farklı kaderler kazanmasını sağlayan siqnal molekülüdür. Bu molekül bir protein, peptit veya başka bir bioloji siqnal olabilir.
Kaynak hüceyrə morfogeni salgıladığında moleküller çevreye yayılır. Kaynağa yakın hüceyrələr yüksək yoğunluğa, uzaqtaki hüceyrələr daha aşağı yoğunluğa maruz kalır. Hücreler bu yoğunluğu müəyyən eşiklerle “okuyarak” farklı gen programlarını etkinleştirebilir.
Basitleştirilmiş bir örnek:
- Yüksek morfogen yoğunluğu: Hücre tipi A,
- orta sıxlıq: Hücre tipi B,
- aşağı sıxlıq: Hücre tipi C.
Böylece tek bir siqnal kaynağı, toxumada birden fazla mekânsal bölgə oluşturabilir.
Difüzyon nasıl işler?
Moleküller yüksək sıxlıqlu bir bölgəden aşağı sıxlıqlu bölgəye doğru yayılır. Bu süreç Fick’in difüzyon yasalarıyla açıklanır.
Tədqiqatnın dayandığı temel fiziki ilişki açıklama amacıyla şu şəkildə gösterilebilir:
\[ J = -D \frac{\partial C}{\partial x} \]
Burada:
- J, birim alan və zamanda geçen madde akısını,
- D, difüzyon katsayısını,
- C, maddenin yoğunluğunu,
- x, uzaydaki konumu ifade eder.
Eksi işareti, akışın yüksək sıxlıqtan aşağı yoğunluğa doğru gerçekleştiğini gösterir.
Bu denklem məqaləde açık biçimde yazılmamıştır; tədqiqat Fick yasalarına atıf yaptığı üçün difüzyon mantığını açıklamak amacıyla məlumatlmiştir.
Viskozite neden “engel” deyil, məlumat üretme koşuludur?
Viskozite, bir akışkanın harekete karşı gösterdiği iç dirençtir. Su aşağı, bal veya hüceyrə içi jel bənzər mühit daha yüksək viskoziteye sahiptir.
Tədqiqatnın ana konseptual önermesi şudur: Sitoplazmanın viskozitesi bioloji siqnali yavaşlatan istenmeyen bir engel deyildir; morfogen gradyanının okunabilir kalmasını sağlayan fiziki koşuldur.
Ortam çok aşağı dirençli olsaydı siqnal sürətla və daha homojen biçimde yayılabilir, mekânsal sıxlıq farkları qısa müddətdə kaybolabilirdi. Viskoz mühit ise moleküllerin yayılmasını yavaşlatarak:
- Kaynağa yakın və uzaq bölgəler arasında fark yaradır,
- gradyanın müəyyən bir süre korunmasını sağlar,
- hüceyrələrin konumlarını sıxlıq üzərindən ayıretməsine izin məlumatr.
Bu nedenle məqalə viskoziteyi “bioloji məlumatnin grameri” olaraq adlandırmaktadır. Bilgi yalnız siqnal molekülünde deyil, siqnalin hareket ettiği mühitın fiziki xüsusiyyətlərinde de bulunur.
Şekil 1 və Şekil 2 üçün təklif olunan görseller ne anlatıyor?
Metinde gerçek çizim yerinə hazırlanması planlanan şekiller tarif edilmektedir.
Şekil 1, doğrusal DNT dizisi ilə dinamik morfogen gradyanı arasındaki ayrımı göstermeyi amaçlamaktadır. Sol tarafta sabit genetik dizi, sağ tarafta kaynak hüceyrəden çevreye doğru azalan sıxlıq gösterilmektedir. Ana mesaj, mekânsal məlumatnin yalnız ardıcıllıqda bulunmadığı; difüzyon sırasında ortaya çıktığıdır.
Şekil 2, eyni boyanın aşağı viskoziteli suda sürətla və daha homojen dağılmasıyla, viskoz jel içində yavaş və belirgin bir sıxlıq gradyanı oluşturmasını karşılaştırmaktadır. Yazar bu karşılaştırmayla mühit direncinin məlumatyi bozmak yerinə düzenleyebileceğini savunmaktadır.
Turing, Crick və gelişimsel örüntü ilişkisi
Məqalə, morfogen anlayışının tarihsel gelişimini Alan Turing’in 1952 tarihli örüntü oluşumu modeline və Francis Crick’in embriyogenezde difüzyon tədqiqatlarına bağlamaktadır.
Turing’in reaksiyon-difüzyon yaklaşımında birden fazla kimyəvi bileşenin üretim, etkileşim və yayılımı; çizgiler, lekeler və tekrarlayıcı bioloji desenler oluşturabilir.
Genel bir reaksiyon-difüzyon sistemi şu şəkildə ifade edilebilir:
\[ \frac{\partial u}{\partial t} = D_u \nabla^2u + f(u,v) \]
\[ \frac{\partial v}{\partial t} = D_v \nabla^2v + g(u,v) \]
Burada:
- u və v, etkileşen kimyəvi maddelerin sıxlıqlarını,
- Du və Dv, difüzyon katsayılarını,
- f və g, maddelerin üretim və etkileşim süreçlerini ifade eder.
Bu denklemler PDF’de məlumatlmemiştir; tədqiqatnın dayandığı reaksiyon-difüzyon fikrini açıklamak amacıyla eklenmiştir.
Böcek kıllarının yönü neden önemli?
Məqalə, böcek kutikulasındaki kılların düzenli yönlenmesini morfogen gradyanının gözlenebilir çıktısı olaraq ələ alır.
Bir kılın yalnız oluşması deyil, müəyyən bir yöne bakması gerekir. Hüceyrələrin yön məlumatsi alması, genetik kodun tek başına “sağa dön” veya “sola dön” komutu vermesinden daha karmaşık bir süreçtir.
Tədqiqatnın yorumuna görə hüceyrə, kimyəvi gradyanın hansı yönde yükseldiğini veya azaldığını okuyarak polarite kazanabilir. Bu nedenle kıl “genetik bir haritayı” deyil, kimyəvi eğimi takip eder.
Metinde təklif olunan Şekil 3, böcek yüzeyindeki kılların ortaq bir yöne yöneldiği şema ilə üzerine bindirilmiş renk gradyanını göstərir.
Məqalə embriyodan beyne nasıl geçiyor?
Tədqiqatnın en iddialı adımı, morfogen gradyanlarında kullanılan fiziki ilkeleri beyin siqnallarıne taşımaktır.
Yazarın kurduğu paralellik şu şekildedir:
| Gelişimsel sistem | Sinirsel sistem |
|---|---|
| Kaynak hüceyrə morfogen yaradır. | Presinaptik nöron aksiyon potansiyeli yaradır. |
| Morfogen fiziki mühitda yayılır. | Elektriksel siqnal akson boyunca ilerler. |
| Viskozite yayılma sürətinı sınırlar. | Membran direnci, kapasitans və miyelinizasyon iletim sürətinı sınırlar. |
| Yoğunluk məsafəyle dəyişir. | İletim gecikmesi və yerel akım məsafəye bağlıdır. |
| Hedef hüceyrə yerel yoğunluğu okur. | Postsinaptik hüceyrə gelen akımı və zamanlamayı işler. |
| Gradyanın yeniden kurulması gerekir. | Nöron və sinapsın bərpası gerekir. |
Bu karşılaştırma tədqiqatnın teorik omurgasıdır. Lakin morfogen difüzyonu ilə sinirsel iletim biyofiziki olaraq eyni süreç deyildir. Birinde moleküler difüzyon, digərinde membran boyunca aktif elektrokimyəvi iletim və sinaptik aktarım vardır. Məqalə bunları bire bir eşitlemekten çok ortaq “mühit və zaman sınırlılığı” üzərindən birleştirmektedir.
Klaustrum nedir?
Klaustrum, beynin iki yarımküresinde olan, insular korteks ilə putamen arasında yer alan nazik bir boz maddə tabakasıdır. Çok sayıda kortikal alanla çift yönlü əlaqəları bulunduğu üçün sensor və koqnitiv məlumatlerin bütünleştirilmesinde rol oynayabileceği düşünülmektedir.
Francis Crick və Christof Koch, klaustrumu bir orkestrayı yöneten şefe benzetmiş və farklı beyin alanlarındaki etkinliği koordine ederek bilinçli deneyimin bütünlüğüne katkıda bulunabileceğini ileri sürmüştür.
Tədqiqat bu hipotezi temel alarak klaustrumu:
- Görsel, işitsel, somatik və duygusal siqnalleri karşılaştıran,
- farklı bölgələrdən gelen zamanlamaları eşleştiren,
- algının “ne, nerede və ne zaman” bileşenlerini ortaq bir çərçivədə birləşdirən mümkün merkez olaraq ələ alır.
Lakin klaustrumun bilinçteki kesin işlevi hâlen araşdırma konusudur. Məqalə, “klaustrum bütün bilinci tek başına yaradır” şeklinde kesinleşmiş bir bilimsel sonuç təqdim etmir.
Şekil 4 üçün təklif olunan beyin diyagramı
Metindeki Şekil 4 açıklaması, koronal beyin kesitinde klaustrumun altın rengiyle vurgulandığı və prefrontal, işitsel, görsel və limbik alanlara uzanan əlaqəların gösterildiği bir şema önermektedir.
Bu görselin amacı klaustrumun büyüklüğünü deyil, əlaqəsal merkez olma niteliğini vurgulamaktır. İnce bir yapı olmasına rağmen geniş kortikal bölgəlerle əlaqə kurması, məqalədeki “entegrasyon yükü” düşüncesinin temelidir.
Sinir siqnalleri neden anında iletilmez?
Dijital kablolarda siqnal çok yüksək sürətlə ilerler. Nöral iletim ise ion kanallarının sırayla açılması, zar potansiyelinin değişmesi və akson boyunca aksiyon potansiyelinin yayılmasıyla gerçekleşir.
İletim sürətinı belirleyen temel etkenler:
- Akson çapı,
- miyelin kalınlığı və bütünlüğü,
- Ranvier düğümleri arasındaki məsafə,
- membran direnci və kapasitansı,
- sıcaklık və hüceyrəsel durumdur.
Miyelinsiz liflerde sürət yaklaşık 0,5–2 m/s düzeyinde olabilirken, sürətlı miyelinli liflerde 120 m/s düzeyine ulaşabilir.
İletim süresi temel olaraq şöyle hesaplanabilir:
\[ t = \frac{d}{v} \]
Burada:
- t, iletim süresini,
- d, kat edilen məsafəyi,
- v, iletim sürətinı ifade eder.
Örneğin 10 santimetrelik məsafə 60 m/s sürətla:
\[ t = \frac{0.10}{60} \approx 0.00167\ \text{s} = 1.67\ \text{ms} \]
Tədqiqat, bu milisaniyelik farklılıkların eşzamanlı algı və kortikal bütünleştirme açısından önemli olabileceğini savunmaktadır.
Şekil 5’in amaçladığı karşılaştırma
Metindeki Şekil 5, məsafə arttıkça üç farklı mühitda siqnal varış süresini karşılaştırmayı önermektedir:
- Fiber optik kablo,
- miyelinli akson,
- miyelinsiz akson.
Fiber optik sistemde grafik neredeyse yatay, miyelinli aksonda orta eğimli, miyelinsiz aksonda daha dik olaraq tasarlanmıştır. Amaç, bioloji siqnallerde məsafənin ihmal edilemeyeceğini göstermektir.
“Rüzgârın çimleri yatırması” benzetmesi neyi anlatıyor?
Tədqiqatnın en belirgin anlatı aracı, çimenlik və rüzgâr benzetmesidir.
Orta kuvvette rüzgâr: Çim eğilir və tekrar doğrulur. Bu, nöronun uyarılması, aksiyon potansiyeli üretmesi və refrakter dönemden sonra tekrar hazır hâle gelmesine benzetilir.
Sürekli güçlü rüzgâr: Çim yatık kalır və rüzgâr sürdüğü sürece toparlanamaz. Bu, davamlı yüksək frekanslı uyarıda sinaptik uçların neyrotransmitter veziküllerini geçici olaraq tüketmesine, yani sinaptik yorgunluğa benzetilir.
Fırtına və karahindiba: Bitki yalnız eğilmez; tohumlarını kaybederek yapısal bütünlüğünü yitirir. Yazar bunu həddindən artıq glutamat stimullaşdırmaı və hüceyrə içine həddindən artıq kalsiyum girişiyle ilişkili eksitotoksisiteye benzetmektedir.
Bu benzetme öğretici olsa da üç düzeyin rəqəmsal ekran maruziyetinde gerçekten sırayla ortaya çıktığı tədqiqat tarafından eksperimental olaraq gösterilmemiştir.
Sinaptik yorgunluk nedir?
Sinaptik terminal, elektriksel uyarı geldiğinde neyrotransmitter içeren vezikülleri zarla birleştirerek kimyəvi siqnal salar. Veziküllerin yeniden doldurulması və geri dönüşnövülmesi zaman alır.
Yüksek frekanslı uyarı sırasında salım sürəti geri dönüşüm sürətinı aşarsa geçici olaraq kullanılabilir vezikül miktarı azalabilir. Böylece eyni uyarıya məlumatlen postsinaptik yanıt giderek küçülebilir.
Basitleştirilmiş bir vezikül rezerv modeli şöyle gösterilebilir:
\[ \frac{dR}{dt} = \frac{R_{\max}-R}{\tau_{\mathrm{geri\ dönüşüm}}} - U R f \]
Burada:
- R, kullanılabilir vezikül rezervini,
- Rmax, toplam rezerv qabiliyyətini,
- τ, geri dönüşüm süresini,
- U, her uyarıda kullanılan rezerv oranını,
- f, uyarı sıklığını ifade eder.
Bu denklem PDF’de məlumatlmemiştir; məqalənin atıf yaptığı sinaptik yorğunluq mekanizmasını açıklamak amacıyla eklenmiştir.
Eksitotoksisite nedir?
Eksitotoksisite, xüsusilə glutamat aracılı həddindən artıq və uzun süreli stimullaşdırma sonucunda hüceyrə içine kontrolsüz kalsiyum girişinin nöronda hasar süreçlerini tetiklemesidir.
Bu süreç:
- Mitokondri işlev bozukluğu,
- proteaz və lipaz aktivasyonu,
- reaktif oksijen türlerinde artış,
- zar və DNT hasarı,
- hüceyrə ölüm yollarının etkinleşmesiyle ilişkili olabilir.
Məqalə bu mekanizmayı həddindən artıq “məlumat baskısının” en uç bioloji analoğu olaraq kullanmaktadır. Lakin telefon, sosyal medya veya çoklu ekran kullanımının sağlıklı insan klaustrumunda eksitotoksik hüceyrə ölümüne yol açtığını gösteren məlumat sunulmamıştır. Bu bölüm teorik analoji olaraq okunmalıdır.
Klaustrum üçün təklif olunan dört aşamalı model
Məqalə, davamlı çoklu rəqəmsal stimullaşdırma altında klaustral bütünleştirmenin dört aşamada bozulabileceğini irəli sürür.
Aşama 1: Zamansal eşzamanlılığın bozulması
Farklı beyin bölgəlerinden gelen siqnaller farklı məsafəler və iletim sürətları səbəbindən eyni anda ulaşmaz. Normalde beyin bu zaman farklarını eşleştirebilir. Məqaləye görə uyaran sayısı və sıklığı arttığında zaman hizalama sistemi zorlanabilir.
Önerilen nəticələr:
- Algısal bütünlüğün zəifləməsi,
- dikkatin daralması,
- “şimdiki an” hissinin parçalanmasıdır.
Aşama 2: Sinaptik yorgunluk
Sürekli yüksək frekanslı iletimde neyrotransmitter salımı, vezikül geri dönüşüm qabiliyyətini aşabilir. Sinyal iletim mümkünlığı düşer və klaustrum bir bütünleştirme merkezi olmaktan çok darboğaza dönüşebilir.
Aşama 3: Koruyucu baskılanma
Sinir sistemi həddindən artıq uyarılmaya karşı inhibitör mekanizmaları artırabilir. GABA aracılı inhibisyonun yükselmesi hüceyrələrin ateşleme eşiğini artırır.
Yazar bu aşamanın öznel olaraq:
- Bilişsel sis,
- dikkat çökmesi,
- duygusal uyuşma,
- dissosiyasyon bənzər hislerle ilişkili olabileceğini irəli sürür.
Bu belirtilerin özel olaraq klaustral baskılanmadan kaynaklandığı tədqiqat tarafından ölçülmemiştir.
Aşama 4: Kronik yapısal sonuç
Məqalə uzun süreli həddindən artıq stimullaşdırmaın sinaptik ağırlıklarda azalma, dendritik diken yoğunluğunda değişim və reseptör düzenlenmesi kimi daha kqəbuledici nəticələr oluşturabileceğini tartışmaktadır.
Bu bölüm genel kronik uyarılma və sinaptik plastisite literanövünden kavramlar daşıyır. Dijital ekran kullanımının klaustrumda bu özgül değişiklikleri oluşturduğu yönünde birbaşa məlumat məlumatlmemiştir.
Şekil 6 və Şekil 7 neyi görselleştirmeyi amaçlıyor?
Şekil 6, üç rüzgâr rejimini normal nöral salınım, sinaptik yorğunluq və eksitotoksisite ilə karşılaştıran üç panelli bir görsel olaraq tarif edilmiştir.
Şekil 7, rəqəmsal stimullaşdırma süresi arttıkça klaustral entegrasyon məlumatmliliğinin əvvəl korunduğu, ardından sürətla düştüğü, baskılanmış düzeyde kaldığı və kronik durumda daha aşağı bir tabana yerleştiği teorik eğriyi önermektedir.
Bu eğri ölçülmüş deney məlumatsi deyildir; yazarın önerdiği dört aşamalı modelin görsel anlatımıdır.
Embriyo ilə beyin arasındaki “yapısal benzerlik”
Tədqiqat iki sistemi şu ortaq ilkelerle birleştirmektedir:
- Sinyalin bir kaynağı vardır.
- Sinyal fiziki bir mühitdan geçer.
- Ortamın direnç xüsusiyyətləri siqnalin sürətinı və biçimini belirler.
- Mesafe siqnalin yoğunluğu veya zamanlaması üzərində etkilidir.
- Alıcı birim yerel siqnali okuyarak karar məlumatr.
- Sistemin yeniden dengelenmesi üçün zaman gerekir.
- Aşırı və davamlı yük, ayırt edici gradyanı poza bilər.
Yazar bu ortaqlığa “yapısal homoloji” adını vermektedir. Buradaki homoloji genetik veya anatomik eş kökenlilik anlamında deyil, məlumat işleme mimarisindeki benzer düzeni ifade etmektedir.
Şekil 8’in önerdiği paralel yapı
Şekil 8, iki sütunlu bir karşılaştırma olaraq tasarlanmıştır:
- Kaynak hüceyrə → sitoplazma → morfogen gradyanı → hedef hüceyrə,
- presinaptik nöron → akson → məsafəye bağlı siqnal → klaustral veya postsinaptik nöron.
İki sistem arasındaki oklar “məsafəye bağlı siqnal zəifləməsi və mühit direnci” ortaqlığını vurgulamaktadır.
“Dijital sistemlərde viskozite yoktur” savı
Məqalə rəqəmsal sistemlərle bioloji sistemlər arasında keskin bir karşıtlık kurmaktadır.
Dijital sistemlər:
- Çok yüksək sürətlə məlumat iletebilir,
- eyni içeriği sınırsız sayıda qəbulediciya kopyalayabilir,
- bioloji refrakter dönem yaşamaz,
- neyrotransmitter tüketmez,
- fasiləsiz çalışabilir.
Bioloji sinir sistemi ise:
- İyon kanallarının fiziki sürətina,
- akson uzunluğuna,
- miyelinizasyona,
- sinaptik kimyaya,
- enerji metabolizmasına,
- bərpa sürelerine bağlıdır.
Yazarın “bioloji uyumsuzluk” olaraq adlandırdığı durum, sınırsız rəqəmsal üretim sürətiyla sınırlı bioloji işleme qabiliyyətinin karşılaşmasıdır.
Lakin rəqəmsal siqnalların de bant genişliği, gecikme, enerji sərfi və donanım sınırları vardır. Bu nedenle “rəqəmsal sistemlərde hiçbir direnç yoktur” ifadesi fiziki anlamda mutlak deyil, bioloji sistemlərle karşılaştırmalı bir tasarım metaforudur.
Şekil 9’un temel mesajı
Önerilen Şekil 9’da rəqəmsal siqnal fasiləsiz tekrarlanan kare dalga olaraq, bioloji siqnal ise aksiyon potansiyeli, refrakter çukur və bərpa eğrisi olaraq gösterilmektedir.
İki eğri üst üste bindirildiğinde rəqəmsal sistemin yeni uyarı talep ettiği anda bioloji sistemin henüz bərpadığı vurgulanmaktadır.
Dijital tasarım açısından təklif olunan sonuç
Məqalə yalnız neyroelmsel bir iddia ileri sürmemekte, tasarım ilkesi önermektedir. Dijital arayüzlerin bioloji istifadəçiyı sınırsız məlumat akışına zorlamak yerinə zaman içində yoğunluğu değişen “gradyanlı” yapıya sahip olması gerektiğini savunmaktadır.
Olası tasarım ilkeleri:
- Kesintisiz bildirim yerinə gruplandırılmış bildirimler,
- yoğun etkileşim dönemleri arasında aşağı stimullaşdırma aralıkları,
- eyni anda çoxsaylı sensor kanalın yüklenmemesi,
- arayüz yoğunluğunun zaman içində kademeli artıp azalması,
- istifadəçiya koqnitiv bərpa zamanı tanınması,
- dikkati davamlı yeniden yönlendiren mekanizmaların azaltılmasıdır.
Nöral salınımlar tasarım ritmine birbaşa dönüşnövülebilir mi?
Məqalə Şekil 10’da rəqəmsal stimullaşdırma ritmini theta və alfa kimi nöral salınımlarla ilişkilendiren bir tasarım önerisi sunmaktadır:
- Theta: yaklaşık 4–8 Hz,
- Alfa: yaklaşık 8–12 Hz.
Lakin bu frekansların birbaşa arayüz bildirim sürətina dönüşnövülmesi eksperimental olaraq doğrulanmış bir tasarım reçetesi deyildir. Beyin salınımları farklı görev, bölgə və bilinç durumlarında dəyişir. Məqalənin önerisi, sayısal bir standarttan çok “stimullaşdırma və bərpa ritmi” ilkesidir.
Şekil 10 neyi tasarlamayı amaçlıyor?
Şekil 10, yüksək stimullaşdırma zirveleriyle aşağı stimullaşdırma və dinlenme vadilerinin dönüşümlü olduğu bir zaman çizelgesi önermektedir. Bu ritim rüzgâr esintileri və dalga döngüleri kimi doğal çevre örüntüleriyle karşılaştırılmaktadır.
Ana düşünce, davamlı maksimum sıxlıq yerinə değişken və bərpaya izin veren arayüz ritmi geliştirmektir.
Tədqiqatnın geçmiş açısından önemi
Gelişim biyolojisi tarihindeki önemli dönüşümlerden biri, organizmanın biçimini yalnız genetik diziyle açıklamaktan uzaqlaşıp genler, moleküler siqnaller və fiziki mühitın birlikte naziklenmesidir.
Tədqiqat bu tarihsel çerçeveyi rəqəmsal tasarıma daşıyır. Tasarımın yalnız iletilen içeriğe deyil, içeriği alan bioloji mühitın xüsusiyyətlərine görə şekillenmesi gerektiğini savunmaktadır.
Bugün açısından önemi
Güncel rəqəmsal mühitlar eyni anda şu kanallardan stimullaşdırma üretebilir:
- Görsel hareket,
- metin,
- ses,
- titreşim,
- bildirim,
- çoklu pencere,
- sosyal geri bildirim,
- davamlı yenilenen akışlar.
Məqalə, arayüzlerin teknik kapasiteye görə deyil, istifadəçinın bioloji işlem və bərpa kapasitesine görə tasarlanması gerektiğini gündeme getirmektedir.
Gündelik yaşama mümkün etkileri
Tədqiqatnın kuramsal yaklaşımı, gündelik rəqəmsal kullanım üçün şu soruları doğurmaktadır:
- Bildirimler davamlı mi, müəyyən zamanlarda toplu mu sunulmalı?
- Bir arayüz eyni anda kaç sensor kanalı kullanmalı?
- Uzun etkileşimlerde doğal duraklama noktaları bulunmalı mı?
- Kullanıcı dikkatini fasiləsiz yakalamak başarı ölçütü sayılmalı mı?
- Yüksek stimullaşdırmadan sonra bərpa zamanı tasarıma nasıl eklenebilir?
Bunlar tədqiqatnın eksperimental olaraq doğruladığı uygulamalar deyil, teorik modelden türetilen tasarım sorularıdır.
Tədqiqatnın güçlü yönleri
- Gelişim biyolojisi, neyroelm və rəqəmsal tasarım arasında özgün bir konseptual bağ kurmaktadır.
- Genetik məlumatnin fiziki mühitdan bağımsız olmadığını anlaşılır biçimde açıklamaktadır.
- Viskozite, məsafə və gecikmeyi bioloji məlumat işlemenin kurucu xüsusiyyətləri olaraq ələ alır.
- Dijital tasarımda yalnız içerik deyil, qəbuledici bioloji mühitın qabiliyyətinin dikkate alınmasını önermektedir.
- Morfogen gradyanı, sinir iletim gecikmesi və refrakter dönem kimi somut biyofiziki kavramlardan yararlanmaktadır.
- Önerilen şekiller, karmaşık teorik ilişkileri görselleştirmeye uygun bir anlatı düzeni sunmaktadır.
- Kesintisiz stimullaşdırma yerinə sıxlıq və bərpa aralıklarına dayalı arayüz tasarımı üçün araştırılabilir hipotezler üretmektedir.
Tədqiqatnın sınırlılıkları
- Hakemlik durumu doğrulanamamaktadır: Metin SSRN tədqiqat raporudur; dergi hakemliği veya kabul məlumatsi məlumatlmemiştir.
- Özgün deney yoktur: İnsan katılımcı, hayvan deneyi, hüceyrə deneyi veya nörogörüntüleme məlumatsi sunulmamıştır.
- Sistematik derleme deyildir: Kaynak seçimi üçün sistematik arama, dahil etme ölçütleri veya kanıt kalitesi değerlendirmesi yapılmamıştır.
- Klaustrum işlevi kesin deyildir: Klaustrumun bilinç üçün merkezi “orkestra şefi” olduğu görüşü tartışmalı bir hipotezdir.
- Dijital maruziyet birbaşa ölçülmemiştir: Ekran süresi, bildirim yoğunluğu veya çoklu görev ilə klaustrum etkinliği arasında məlumat sunulmamıştır.
- Nedensellik yoktur: Dijital stimullaşdırmaın sinaptik yorğunluq veya klaustral desenkronizasyon oluşturduğu birbaşa gösterilmemiştir.
- Eksitotoksisite analojisi güçlüdür: Normal rəqəmsal kullanımın eksitotoksik hüceyrə ölümüne yol açtığına ilişkin kanıt sunulmamıştır.
- Farklı bioloji mekanizmalar birleştirilmektedir: Morfogen difüzyonu və aksiyon potansiyeli iletimi eyni fiziki süreç deyildir.
- Dört aşamalı model doğrulanmamıştır: Evreler teorik sıralamadır; biyobelirteç veya zaman eşiği məlumatlmemiştir.
- Belirtiler özgül deyildir: Bilişsel sis, diqqət dağılması və dissosiyasyon çoxsaylı psikolojik və fizyolojik nedenle ortaya çıxa bilər.
- Tasarım önerileri test edilmemiştir: “Gradyanlı” arayüzlerin koqnitiv performansı iyileştirdiğini gösteren deney sunulmamıştır.
- Dijital və bioloji karşıtlığı basitleştiricidir: Dijital sistemlərin de gecikme, enerji, hata və bant genişliği sınırları vardır.
Tədqiqat ne söylüyor?
- Bioloji məlumat, yalnız genetik kod veya elektriksel siqnalde deyil, siqnal ilə fiziki mühit arasındaki etkileşimde ortaya çıkar.
- Sitoplazmik viskozite morfogen gradyanlarının oluşmasını və mövqesəl məlumatnin okunmasını sağlar.
- Sinir iletiminde məsafə, iletim sürəti və bərpa süresi önemlidir.
- Klaustrumun çoklu kortikal siqnalların zamanlamasını bütünleştiren bir merkez olabileceği düşüncesi, rəqəmsal stimullaşdırma tartışması üçün teorik temel olaraq kullanılabilir.
- Kesintisiz və çoxkanallı rəqəmsal stimullaşdırma, bioloji sinir sisteminin sınırlı işleme və bərpa kapasitesiyle uyumsuz olabilir.
- Dijital tasarımın sıxlıq, ritim, duraklama və bərpa aralıklarını dikkate alması gerektiği savunulmaktadır.
Tədqiqat ne söylemiyor?
- Dijital ekran kullanımının klaustrumu kesin biçimde bozduğunu kanıtlamıyor.
- Sosyal medya veya telefon kullanımının nöron ölümüne yol açtığını göstermiyor.
- Klaustrumun bilinci tek başına yaratdığıni kanıtlamıyor.
- Belirli bir ekran süresinin güvenli veya təhlükəli olduğunu belirlemiyor.
- Dijital stimullaşdırmaın klinik dissosiyasyon oluşturduğunu eksperimental olaraq göstermiyor.
- Sinaptik yorgunluğun xüsusilə rəqəmsal içerikten kaynaklandığını kanıtlamıyor.
- Önerilen dört aşamanın insan beyninde gözlendiğini göstermiyor.
- Theta veya alfa frekanslarının birbaşa arayüz ritmi olaraq kullanılması gerektiğini doğrulamıyor.
- “Gradyanlı tasarımın” koqnitiv sağlığı kesin olaraq koruduğunu kanıtlamıyor.
Gelecekte nasıl sınanabilir?
Tədqiqatnın teorik modelini bilimsel olaraq değerlendirmek üçün aşağıdaki araşdırmalar yapılabilir:
- Yüksek və aşağı rəqəmsal stimullaşdırma koşullarında fMRI ilə klaustrum əlaqəsallığının karşılaştırılması,
- Bildirim sıklığı və çoklu sensor kanal sayısının dikkat performansına etkisi,
- Uzun süreli ekran kullanımında EEG eşzamanlılık ölçümleri,
- Yüksek stimullaşdırma və dinlenme aralığı içeren arayüzlerin randomize karşılaştırılması,
- Sinaptik yorgunluğu temsil eden nörofizyolojik göstəricilərin ölçülmesi,
- Klaustrum dışındaki salience, frontoparietal və varsayılan mod ağlarının naziklenmesi,
- Kullanıcıların öznel koqnitiv yorgunluk düzeyleriyle nesnel performansın birlikte değerlendirilmesi,
- Farklı yaş gruplarında bioloji bərpa sürelerinin karşılaştırılması,
- Dijital görev sonrası uyku, bellek və dikkat bərpasının uzunlamasına ölçülmesi,
- Arayüz yoğunluğunun kademeli olaraq azaltıldığı “gradyanlı tasarım” prototiplerinin test edilmesi.
Tədqiqatnın Yöntemi və Bulguları
Tədqiqat tasarımının teknik özeti
| Tədqiqat növü | Kavramsal tasarım kuramı və disiplinler arası tədqiqat raporu |
|---|---|
| Yayın mühitı | SSRN Working Paper |
| Sunum tarihi | Mayıs 2026 |
| Akademik bağlam | Florida International University, Doctor of Design programı |
| Özgün deney | Yok |
| İnsan katılımcı | Yok |
| Nörogörüntüleme məlumatsi | Yok |
| Sistematik derleme | Hayır |
| Temel bioloji kavramlar | Morfogen, difüzyon, viskozite, mövqesəl məlumat, sinaptik yorğunluq, iletim gecikmesi |
| Temel neyroelmsel yapı | Klaustrum |
| Temel tasarım iddiası | Dijital arayüzlerin bioloji bərpa ritmine uygun sıxlıq gradyanları taşıması |
| Hakemlik durumu | Metin üzərindən doğrulanamamaktadır |
Tədqiqatnın konseptual analiz zinciri
- Genetik dizinin tek başına mekânsal beden düzenini açıklamadığı belirtilir.
- Francis Crick’in mövqesəl məlumat və morfogen gradyanı düşüncesi ele alınır.
- Sitoplazmik viskozitenin difüzyon sürətinı və gradyan kararlılığını belirlediği savunulur.
- Böcek kıllarının yönelimi, gradyanın fiziki çıktısı olaraq örneklenir.
- Klaustrum, çoklu kortikal siqnalleri bütünleştiren mümkün merkez olaraq tartışılır.
- Akson uzunluğu, miyelinizasyon və iletim sürətinın zamanlama farkları yaratdığı gösterilir.
- Sürekli rəqəmsal stimullaşdırma üçün sinaptik yorğunluq və desenkronizasyon modeli önerilir.
- Normal stimullaşdırma, yorgunluk və eksitotoksisite rüzgâr-çim benzetmesiyle açıklanır.
- Morfogenetik və sinirsel sistemlər ortaq “məsafə və mühit” fiziği altında karşılaştırılır.
- Dijital tasarım üçün stimullaşdırma və bərpa aralıklarına dayanan gradyan ilkesi önerilir.
Temel fiziki ilişkiler
Difüzyon akısı:
\[ J = -D \frac{\partial C}{\partial x} \]
İletim süresi:
\[ t = \frac{d}{v} \]
On santimetrelik örnek məsafə:
\[ t = \frac{0.10\ \text{m}}{60\ \text{m/s}} \approx 1.67\ \text{ms} \]
Bu matematiksel ifadeler məqaləde denklem olaraq sunulmamıştır; tədqiqatda kullanılan difüzyon və iletim gecikmesi kavramlarını açıklamak amacıyla məlumatlmiştir.
Önerilen dört aşamalı “məlumat baskısı” modeli
| Aşama | Önerilen mekanizma | Yazarın ilişkilendirdiği mümkün deneyim |
|---|---|---|
| 1 | Kortikal siqnalların zaman hizalamasında bozulma | Parçalanmış algı və dikkat daralması |
| 2 | Nörotransmitter vezikül rezervinde geçici azalma | Sinaptik yorgunluk və işleme darboğazı |
| 3 | İnhibitör koruyucu baskılanma | Bilişsel sis, uyuşma və dikkat çökmesi |
| 4 | Uzun dönemli sinaptik yeniden yapılanma | Daha aşağı kronik bütünleştirme kapasitesi |
Bu tablo eksperimental sonuç deyil, tədqiqatnın teorik modelinin düzenlenmiş özetidir.
Morfogenetik və sinirsel sistem karşılaştırması
| Ortak ilke | Morfogenetik sistem | Sinir sistemi |
|---|---|---|
| Sinyal kaynağı | Morfogen üreten hüceyrə | Presinaptik nöron |
| Taşıyıcı mühit | Sitoplazmik veya hüceyrə dışı mühit | Akson və sinaps |
| Direnç | Viskozite | Membran direnci və kapasitans |
| Mesafe etkisi | Yoğunluk azalması | İletim gecikmesi və akım değişimi |
| Alıcı | Hedef hüceyrə | Postsinaptik nöron |
| Toparlanma | Gradyanın yeniden kurulması | Repolarizasyon və vezikül geri dönüşümü |
| Aşırı yük sonucu | Konumsal ayrımın kaybı | Zamanlama və bütünleştirmenin bozulması |
Tədqiqatnın gerçek bulgusu ilə teorik iddiasının ayrılması
| Düzey | İçerik |
|---|---|
| Yerleşik bilimsel arka plan | Morfogenler sıxlıq gradyanları oluşturabilir; sinir iletim sürəti sınırlıdır; nöronların refrakter dövrü və sinapsların geri dönüşüm gereksinimi vardır. |
| Tartışmalı bilimsel hipotez | Klaustrum çoklu sensor içeriğin bütünleştirilmesinde merkezi rol oynayabilir. |
| Məqalənin teorik çıkarımı | Sürekli rəqəmsal məlumat baskısı klaustral desenkronizasyon və sinaptik yorğunluq oluşturabilir. |
| Doğrudan gösterilmeyen iddia | Dijital kullanımın klaustrumda yapısal hasar veya eksitotoksisite oluşturması. |
| Tasarım önerisi | Dijital arayüzlerde yüksək stimullaşdırma ilə bioloji bərpa dönemleri arasında ritmik gradyanlar kurulması. |
Kaynak və Yöntem Notu
Bu içerik, Deborah DeSilets tarafından hazırlanan “The Viscous Code: Morphogenetic Gradients, Neural Latency, and the Biological Mismatch of Digital Cognition” başlıklı tədqiqatya dayanmaktadır.
Metin Mayıs 2026’da SSRN’ye sunulmuş, Florida International University Doctor of Design programıyla ilişkili bir working paper və konseptual tasarım kuramı tədqiqatsıdır. Dergi kabulü veya tamamlanmış hakemlik məlumatsi məlumatlmediğinden tədqiqat, hakemliği metin üzərindən doğrulanamayan tədqiqat olaraq değerlendirilmelidir.
Tədqiqat yeni laboratuvar məlumatsi, insan katılımcı deneyi, klinik değerlendirme, EEG, fMRI, hüceyrə külnövü veya hayvan deneyi təqdim etmir. Kaynak literatürdeki morfogen difüzyonu, klaustrum, sinir iletim sürəti, sinaptik plastisite və eksitotoksisite kavramlarını bir araya getirerek teorik model geliştirmektedir.
Morfogen gradyanlarının gelişimsel mövqesəl məlumat oluşturması, akson iletim sürətlarının sınırlı olması və sinaptik terminallerin geri dönüşüm gerektirmesi bilimsel arka plana dayanmaktadır. Buna qarşı davamlı rəqəmsal stimullaşdırmaın birbaşa klaustral desenkronizasyon, koruyucu baskılanma veya kqəbuledici yapısal değişiklik oluşturduğu bu tədqiqatda eksperimental olaraq gösterilmemiştir.
Klaustrumun bilinç üçün merkezi entegrasyon organı olduğu görüşü kesinleşmiş bir bulgu deyil, Crick və Koch tarafından ileri sürülen və sonraki araşdırmalarda tartışılmaya devam edilen bir hipotezdir.
Tədqiqatdaki rüzgâr, çim və karahindiba benzetmeleri bioloji mekanizmaları açıklamak üçün kullanılan teorik metaforlardır. Bu metaforlar rəqəmsal ekran kullanımının eksitotoksik nöron ölümüne neden olduğunu kanıtlamaz.
Metinde tarif edilen on şekil, eksperimental məlumat grafikleri deyildir. Bunlar yazarın konseptual ilişkileri görselleştirmek amacıyla önerdiği diyagramlardır.
Bu məqalə yalnız yüklenen tədqiqatdaki konseptual çerçeve, kaynaklar, təklif olunan şekiller, biyofiziki açıklamalar, tasarım çıkarımları və sınırlılıklar esas alınarak hazırlanmıştır. PDF’de bulunmayan klinik tanı, kesin beyin hasarı, güvenli ekran süresi, tedavi önerisi veya rəqəmsal teknolojinin kaçınılmaz olaraq nörolojik bozulmaya yol açtığı yönünde iddia eklenmemiştir.
Şərh yazın
E-poçt ünvanınız yayımlanmayacaq. Məcburi sahələr * ilə işarələnib